


El Reloj Molecular: Del Azar de las Mutaciones a la Medición del Tiempo
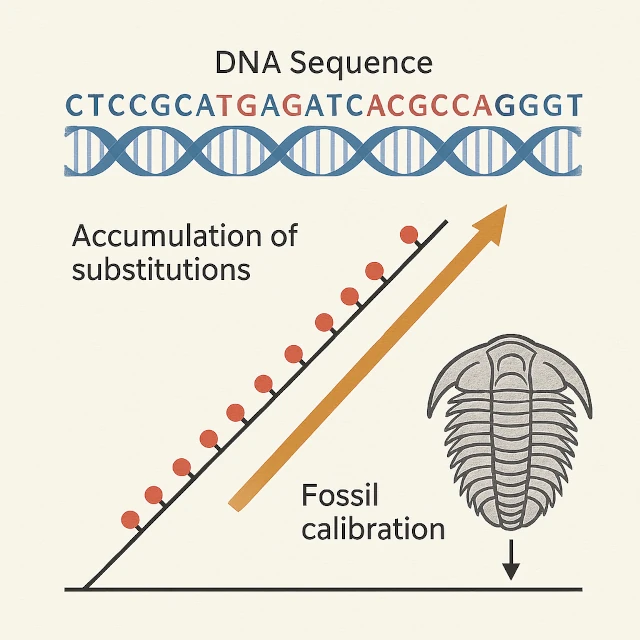
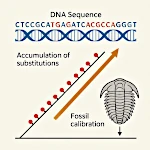
esquema conceptual que muestra una secuencia de ADN, la acumulación de sustituciones y la calibración por fósil.
Fuente de la imagen: astronoo.com (nueva ventana)
¿Qué es el reloj molecular y cómo permite datar eventos evolutivos?
El reloj molecular es un concepto de biología evolutiva que estima el tiempo transcurrido desde la divergencia de dos linajes midiendo las diferencias genéticas acumuladas en sus genomas. El principio se basa en la acumulación de sustituciones neutras a un ritmo relativamente constante. La relación es: T = D / (2μ), donde T es el tiempo de divergencia, D la distancia genética y μ la tasa de mutación. Este método ha datado eventos clave: la divergencia humano-chimpancé, la salida de África de Homo sapiens, la domesticación del perro y el surgimiento del SARS-CoV-2.
Principio del Reloj Molecular
El reloj molecular (reloj Molecular) es un concepto revolucionario en biología evolutiva que permite datar eventos de especiación utilizando la tasa de acumulación de mutaciones en el genoma.
La expresión "reloj molecular" designa la posibilidad de estimar el tiempo transcurrido desde la divergencia de dos linajes midiendo la cantidad de diferencias acumuladas en sus secuencias biomoleculares. El principio se basa en la idea de que las sustituciones neutras se acumulan a un ritmo promedio, ritmo que puede ser explotado como un cronómetro.
N.B.:
Una sustitución neutra es un cambio en la secuencia de ADN o proteína que no tiene ningún efecto en la supervivencia o reproducción del organismo.
Estas sustituciones no son favorecidas ni eliminadas por la selección natural y, por lo tanto, se acumulan de manera aleatoria con el tiempo.
En su forma más simple, la relación que vincula divergencia y tiempo está dada por \(T = \dfrac{D}{2\mu}\).
Parámetros del Reloj Molecular
| Símbolo | Nombre | Unidad | Significado físico |
|---|---|---|---|
| \(T\) | Tiempo de divergencia | años (o Ma) | Duración transcurrida desde que dos linajes divergieron de un ancestro común; es la medida de tiempo que el reloj molecular permite estimar. |
| \(D\) | Distancia genética | sustituciones/sitio | Proporción media de diferencias acumuladas entre dos secuencias homólogas desde su separación; refleja el número de sustituciones neutralizadas por evolución independiente en cada linaje. |
| \(\mu\) | Tasa de mutación | sustituciones/sitio/año | Frecuencia a la que una base particular es reemplazada por otra durante una unidad de tiempo en un linaje; es la velocidad del reloj molecular. |
N.B.:
En biología evolutiva, un linaje designa un conjunto de organismos que descienden unos de otros por reproducción, formando una cadena continua en el tiempo.
En el contexto del reloj molecular (modelo que permite estimar el tiempo transcurrido desde una divergencia evolutiva), cada linaje acumula sustituciones de manera independiente, y la distancia genética \(D\) entre dos linajes corresponde a la suma de los cambios ocurridos en cada uno desde su último ancestro común.
Aplicaciones y Dataciones Clave
El reloj molecular ha revolucionado nuestra comprensión de la evolución al permitir datar con precisión eventos clave en la historia de la vida, desde divergencias entre grandes grupos taxonómicos hasta eventos evolutivos recientes.
Ha resuelto, en particular, debates de larga data sobre la cronología de la evolución y ha proporcionado marcos temporales para fenómenos tan variados como la emergencia de nuevas especies, las migraciones humanas, el origen de pandemias y la domesticación de especies.
Dataciones clave de la evolución por análisis genético
| Evento de divergencia | Tiempo estimado | Material genético utilizado | Fiabilidad |
|---|---|---|---|
| Eucariotas - Procariotas | 2-3 mil millones de años | Genes ribosomales | Moderada |
| Origen de la fotosíntesis | 2.5-3.2 mil millones de años | Genes fotosintéticos | Moderada |
| Mamíferos - Aves | 310 millones de años | Genes conservados | Media |
| Origen de las plantas con flores | 300 millones de años | Genes cloroplásticos | Media |
| Radiación (diversificación rápida) de los dinosaurios | 230-250 millones de años | Genes esqueléticos | Moderada |
| Divergencia aves - cocodrilos | 240-275 millones de años | Genes nucleares | Media |
| Radiación (diversificación rápida) de los mamíferos placentarios | 66-100 millones de años | ADN mitocondrial y nuclear | Media |
| Cetáceos - Hipopótamos | 50-60 millones de años | Genes nucleares | Alta |
| Humano - Chimpancé | 6-8 millones de años | Genoma nuclear y mitocondrial | Alta |
| Ratón - Rata | 12-24 millones de años | Genoma completo | Alta |
| Divergencia Neandertal - Humano moderno | 550,000-765,000 años | Genoma nuclear antiguo | Alta |
| Domesticación del perro | 15,000-40,000 años | ADN mitocondrial | Media |
| Colonización de América | 15,000-20,000 años | Genoma humano completo | Alta |
| Migración fuera de África de Homo sapiens | 60,000-100,000 años | ADN mitocondrial y cromosoma Y | Alta |
| Domesticación del arroz | 8,000-13,000 años | Genoma cloroplástico | Alta |
| Emergencia del VIH-1 | Principios del siglo XX | Genoma viral completo | Alta |
| Emergencia del SARS-CoV-2 | 2019 | Genoma viral completo | Alta |
- Fuentes complementarias y herramientas: PubMed / NCBI (nueva ventana), BEAST (relojes bayesianos) (nueva ventana), Literatura científica (nueva ventana).
Límites y Desafíos
A pesar de su poder, el reloj molecular presenta varias limitaciones importantes:
- Calibración: Depende de la calidad de los datos fósiles
- Tasas variables: La tasa de mutación no es constante entre linajes
- Saturación: A lo largo de largos períodos, los mismos sitios pueden mutar múltiples veces
- Selección natural: Puede sesgar la acumulación de mutaciones neutras
- Fuente: Nature - The molecular clock and evolutionary relationships (nueva ventana) y Science - Molecular Clocks in Evolution (nueva ventana).
FAQ: Todo sobre el reloj molecular
¿Qué es una "sustitución neutra" y por qué es central para el reloj molecular?
Una sustitución neutra es una mutación puntual en una secuencia de ADN o proteína que no tiene efecto en la supervivencia o reproducción del organismo. Estas mutaciones no son favorecidas ni eliminadas por la selección natural; se acumulan de manera aleatoria y regular en el tiempo. Es esta regularidad estadística la que permite utilizarlas como un "cronómetro" molecular.
¿Cómo "calibran" los científicos el reloj molecular?
La calibración del reloj molecular se basa en puntos de referencia temporales independientes, principalmente proporcionados por los fósiles. Por ejemplo, si el fósil más antiguo conocido de un grupo data de unos 66 millones de años, se usa esa edad como punto de calibración para calcular la tasa de mutación μ. La distancia genética D medida entre dos especies se divide por 2×T para obtener μ. Esta tasa calibrada se aplica luego a otros grupos. Los métodos modernos utilizan modelos bayesianos que integran múltiples fósiles y consideran variaciones de tasa.
¿Cuáles son las principales limitaciones del reloj molecular?
El reloj molecular tiene varias limitaciones importantes: 1) dependencia de la calibración; 2) tasas de mutación variables entre linajes; 3) saturación en tiempos muy largos; 4) selección natural que puede sesgar la acumulación de mutaciones. Los métodos modernos intentan corregir estos sesgos.
 De la Ley Cero a las IA generativas: las leyes de Asimov en cuestión
 ¿Cómo nacen y desaparecen las sociedades complejas?
 El cerebro frente a las IA: crónica de un órgano desbordado por el diluvio de datos
 La IA ha aprendido a pensar: ¿aprenderá la conciencia artificial a ser?
 La Obsesión por el Futuro: Cuando la predicción da forma a lo vivo
 ¿Qué regiones del mundo seguirán siendo habitables durante la próxima era glacial?
 Evolución rápida: el trueno darwiniano del siglo 21
 Desequilibrio Fatal: El Poder Insospechado de lo Infinitamente Pequeño
 El Gran Filtro de la Evolución: la clave de la paradoja de Fermi
 El Último Shock Glacial: El Dryas Reciente y sus Consecuencias en las Sociedades Prehistóricas
 ¿Por qué el girasol se gira hacia el sol? Una respuesta desde el Lagrangiano
 Población mundial 2026: tendencias demográficas por continente
 Por qué la vida surge del desequilibrio y desaparece en el equilibrio termodinámico
 El Espectro Electromagnético y la Visión: Lo que nuestros ojos perciben de nuestro planeta
 Yo
y No-Yo: Una Lectura Física Simplificada de la Identidad
 El Reloj Molecular: Del Azar de las Mutaciones a la Medición del Tiempo
 La
Célula Mínima: La Emergencia Inevitable
 Las Huellas de White Sands: Los Primeros Pasos de América
 Homininos:
Aparición, Expansión y Extinciones
 Nacimientos en Declive: ¿Catástrofe Demográfica o Evolución Natural?
 Selección Natural vs. Azar: ¿Por qué la Evolución no es una Lotería?
 ¿Y si la Vida Partiera de la Tierra? Una Revolución en la Teoría de la Panspermia
 La Gran Bifurcación que Transformará Nuestro Mundo: ¿Supervivencia o Colapso?
 Química primordial: ¿Dónde nacen las primeras moléculas orgánicas?
 CO y CO₂:
Dos Gases, Dos Riesgos, Dos Mecanismos Biológicos
 Sincronización Espontánea: un Fenómeno Universal, de la Física a lo Vivo
 Desafío temporal: ¿cómo ilustrar mil millones de años?
 Los Tres Componentes Esenciales para la Aparición de la Vida
 ¿Por qué el género Homo estuvo al borde de la extinción hace 900.000 años?
 El primer paso hacia el surgimiento de la vida
 La biosfera de la sombra
 Declive del antropocentrismo: cuando el cosmos relativiza nuestra importancia
 ¡El cangrejo
herradura, un fósil viviente!
 Origen de la
vida en la Tierra: Teoría de la panspermia
 Origen de la vida en la Tierra: teoría de los fumardores blancos
 ¿Por qué 37 grados Celsius?
 ¿Estamos solos en el cosmos? Entre ciencia y especulación
 Rastros
de Vida en el Hielo: La Aparición de los Mamuts Prehistóricos
 El Dryas: La mini edad de hielo que diezmó la megafauna
 Las Dos Grandes Glaciaciones: Sobrevivir en los Océanos de una Tierra Helada
 Regeneración en Animales tras Amputación: El Recrecimiento Orgánico
 En los Confines
de la Vida: Mephisto, Gusano de las Profundidades Infernal
 Descubrimiento
de bolas de bucky sólidas en el espacio
 La Marcha
Humana: Los Orígenes del Bipedismo en los Hominidos
 El
paso entre lo inerte y lo vivo
 Entropía: ¿Qué
es el Tiempo?
 Karabo: Una ventana a la evolución humana
 La
gran narrativa de la complejidad: de las partículas elementales a los primeros organismos
 Megapod usa
calor volcánico
 Ardipithecus:
El homínido etíope de 4,4 millones de años
 Selección Natural: La Polilla del Abedul
 El Ordovícico:
La era de los corales, trilobites y graptolitos
 El Agua
Líquida, Mucho Más Que un Solvente: Un Acelerador de Reacciones Químicas
 Neandertal:
El Primo Perdido de la Humanidad
 ASIMO: El primer
humanoide
 ¿Cuáles son las condiciones que permitieron la aparición de la vida?
 Paradoja de Fermi y caverna de Platón: ¿Estamos solos o ciegos?
 Tardígrados:
Criaturas indestructibles que desafían las leyes de la biología
 Toumaï: Uno
de los homíninos más antiguos conocidos
 El
Árbol de la Vida: Miles de millones de especies extintas y una sola comunidad ancestral
 La
Vida en los Abismos: La Adaptación Extrema de las Criaturas
 Cianobacterias
y la Crisis del Oxígeno: Una Catástrofe Ecológica Primordial
 De
la Materia a la Vida: La Frontera Difusa de la Emergencia Biológica
 La Rana Más Pequeña del Mundo: Secretos Fisiológicos de un Microvertebrado
 La explicación de la Pequeña Edad de Hielo
 La Luz de la Vida: una Biosignatura Revelada por la Luna
 Luz
Viva: Los Secretos Deslumbrantes de la Bioluminiscencia
 Más allá de nuestros sentidos, las grandes revoluciones científicas
 La
Sopa Primigenia: Cuna Química de la Vida Terrestre
 Población Mundial: De Mil Millones de Humanos a la Saturación Demográfica
 Ecología
y colapso: el caso de la Isla de Pascua
 Fractales:
Estructuras Universales Autoorganizadas