


L’Horloge Moléculaire: Du hasard des mutations à la mesure du temps
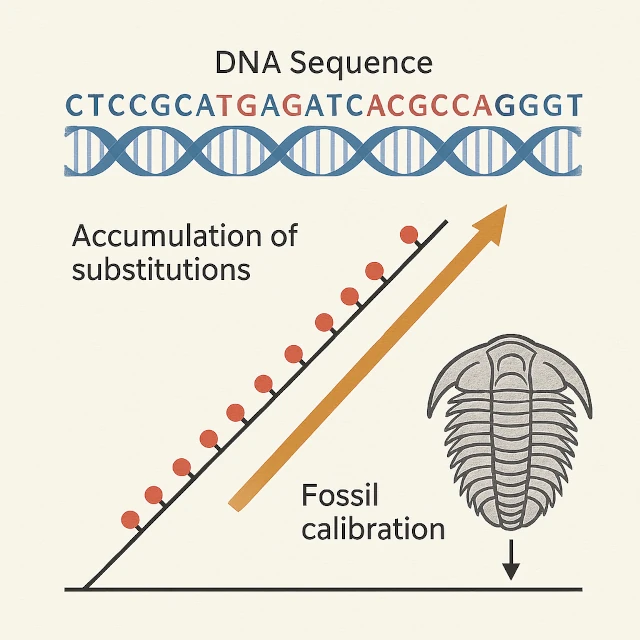
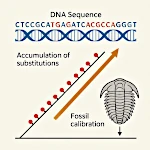
schéma conceptuel montrant une séquence d'ADN, l'accumulation de substitutions et la calibration par fossile.
Source image : astronoo.com (nouvelle fenêtre)
Qu'est-ce que l'horloge moléculaire et comment permet-elle de dater les événements évolutifs ?
L'horloge moléculaire est un concept de biologie évolutive qui permet d'estimer le temps écoulé depuis la divergence de deux lignées (espèces, populations) en mesurant les différences génétiques accumulées dans leurs génomes. Le principe repose sur l'accumulation des substitutions neutres (mutations sans effet sur la survie ou la reproduction) à un rythme relativement constant dans le temps. La relation est : T = D / (2μ), où T est le temps de divergence, D la distance génétique (proportion de différences entre séquences homologues) et μ le taux de mutation. Cette méthode a permis de dater des événements majeurs : la divergence homme-chimpanzé (~6-8 Ma), la sortie d'Afrique d'Homo sapiens (~60 000-100 000 ans), la domestication du chien (~15 000-40 000 ans) ou l'émergence du SARS-CoV-2 (2019).
Principe de l'horloge moléculaire
L'horloge moléculaire (horloge Moléculaire) est un concept révolutionnaire en biologie évolutive qui permet de dater les événements de spéciation en utilisant le taux d'accumulation des mutations dans le génome.
L'expression "horloge moléculaire" désigne la possibilité d'estimer le temps écoulé depuis la divergence de deux lignées en mesurant la quantité de différences accumulées dans leurs séquences biomoléculaires. Le principe repose sur l'idée que les substitutions neutres s'accumulent à un rythme moyen, ce rythme étant exploitable comme un chronomètre.
N.B. :
Une substitution neutre est un changement dans la séquence d’ADN ou de protéine qui n’a **aucun effet sur la survie ou la reproduction de l’organisme**.
Ces substitutions ne sont ni favorisées ni éliminées par la sélection naturelle et s’accumulent donc de manière aléatoire dans le temps.
Dans sa forme la plus simple, la relation liant divergence et temps est donnée par \(T = \dfrac{D}{2\mu}\)
Paramètres de l'horloge moléculaire
| Symbole | Nom | Unité | Signification physique |
|---|---|---|---|
| \(T\) | Temps de divergence | années (ou Ma) | Durée écoulée depuis que deux lignées ont divergé d’un ancêtre commun ; c’est la mesure du temps que l’horloge moléculaire permet d’estimer. |
| \(D\) | Distance génétique | substitutions / site | Proportion moyenne de différences accumulées entre deux séquences homologues depuis leur séparation ; reflète le nombre de substitutions neutralisées par évolution indépendante dans chaque lignée. |
| \(\mu\) | Taux de mutation | substitutions / site / an | Fréquence à laquelle une base particulière est remplacée par une autre au cours d’une unité de temps dans une lignée ; c’est la vitesse de l’horloge moléculaire. |
N.B. :
En biologie évolutive, une lignée désigne un ensemble d'organismes descendant les uns des autres par reproduction, formant une chaîne continue dans le temps.
Dans le contexte de l’horloge moléculaire (modèle permettant d’estimer le temps écoulé depuis une divergence évolutive), chaque lignée accumule indépendamment des substitutions, et la distance génétique \(D\) entre deux lignées correspond à la somme des changements survenues dans chacune depuis leur dernier ancêtre commun.
Applications et Datations Clés
L'horloge moléculaire a révolutionné notre compréhension de l'évolution en permettant de dater avec précision des événements clés de l'histoire du vivant, depuis les divergences entre grands groupes taxonomiques jusqu'aux événements évolutifs récents.
Elle a notamment résolu des débats de longue date sur la chronologie de l'évolution et fourni des cadres temporels pour des phénomènes aussi variés que l'émergence de nouvelles espèces, les migrations humaines, l'origine des pandémies et la domestication des espèces.
Datations clés de l'évolution par analyse génétique
| Événement de divergence | Temps estimé | Matériel génétique utilisé | Fiabilité |
|---|---|---|---|
| Eucaryotes - Procaryotes | 2-3 milliards d'années | Gènes ribosomaux | Modérée |
| Origine de la photosynthèse | 2,5-3,2 milliards d'années | Gènes photosynthétiques | Modérée |
| Mammifères - Oiseaux | 310 millions d'années | Gènes conservés | Moyenne |
| Origine des plantes à fleurs | 300 millions d'années | Gènes chloroplastiques | Moyenne |
| Radiation (diversification rapide) des dinosaures | 230-250 millions d'années | Gènes squelettiques | Modérée |
| Divergence oiseaux - crocodiliens | 240-275 millions d'années | Gènes nucléaires | Moyenne |
| Radiation (diversification rapide) des mammifères placentaires | 66-100 millions d'années | ADN mitochondrial et nucléaire | Moyenne |
| Cétacés - Hippopotames | 50-60 millions d'années | Gènes nucléaires | Élevée |
| Homme - Chimpanzé | 6-8 millions d'années | Génome nucléaire et mitochondrial | Élevée |
| Souris - Rat | 12-24 millions d'années | Génome complet | Élevée |
| Divergence Néandertal - Homme moderne | 550 000-765 000 ans | Génome nucléaire ancien | Élevée |
| Domestication du chien | 15 000-40 000 ans | ADN mitochondrial | Moyenne |
| Colonisation des Amériques | 15 000-20 000 ans | Génome humain complet | Élevée |
| Sortie d'Afrique d'Homo sapiens | 60 000-100 000 ans | ADN mitochondrial et chromosome Y | Élevée |
| Domestication du riz | 8 000-13 000 ans | Génome chloroplastique | Élevée |
| Émergence du VIH-1 | Début 20ème siècle | Génome viral complet | Élevée |
| Émergence SARS-CoV-2 | 2019 | Génome viral complet | Élevée |
- Sources complémentaires et outils: PubMed / NCBI (nouvelle fenêtre), BEAST (horloges bayésiennes) (nouvelle fenêtre), Littérature scientifique (nouvelle fenêtre).
Limites et Défis
Malgré sa puissance, l'horloge moléculaire présente plusieurs limitations importantes:
- Calibration: Dépend de la qualité des données fossiles
- Taux variables: Le taux de mutation n'est pas constant entre lignées
- Saturation: Sur de longues périodes, les mêmes sites peuvent muter plusieurs fois
- Sélection naturelle: Peut biaiser l'accumulation des mutations neutres
- Source: Nature - The molecular clock and evolutionary relationships (nouvelle fenêtre) et Science - Molecular Clocks in Evolution (nouvelle fenêtre).
FAQ : Tout savoir sur l'horloge moléculaire
Qu'est-ce qu'une « substitution neutre » et pourquoi est-elle au cœur du fonctionnement de l'horloge moléculaire ?
Une substitution neutre est une mutation ponctuelle dans une séquence d'ADN ou de protéine qui n'a aucun effet sur la survie ou la reproduction de l'organisme. Ces mutations ne sont ni favorisées ni éliminées par la sélection naturelle ; elles s'accumulent donc de manière aléatoire et régulière au fil du temps, comme des « coups de crayon » sur un texte. C'est cette régularité statistique qui permet d'utiliser les substitutions neutres comme un « chronomètre » moléculaire : plus deux lignées ont divergé depuis longtemps, plus elles ont accumulé de différences neutres dans leurs génomes.
Comment est-ce que les scientifiques « étalonnent » l'horloge moléculaire ?
L'étalonnage de l'horloge moléculaire repose sur des points de référence temporels indépendants, principalement fournis par les fossiles. Par exemple, si le plus ancien fossile connu d'un groupe (ex: mammifères placentaires) date d'environ 66 millions d'années, on utilise cet âge comme point de calibration pour calculer le taux de mutation μ (substitutions par site par an). On divise alors la distance génétique D mesurée entre deux espèces par 2×T (où T est le temps de divergence connu) pour obtenir μ. Ce taux calibré est ensuite appliqué à d'autres groupes pour estimer leurs temps de divergence. Les méthodes modernes utilisent des modèles bayésiens qui intègrent plusieurs fossiles et prennent en compte les variations de taux entre lignées.
Quelles sont les principales limites de l'horloge moléculaire ?
L'horloge moléculaire présente plusieurs limitations importantes : 1) la dépendance à la calibration : la qualité des datations repose sur la fiabilité des fossiles utilisés comme points de référence ; 2) les taux de mutation variables : le taux de mutation n'est pas constant entre lignées (il peut varier selon les espèces, les générations, ou les pressions de sélection) ; 3) la saturation : sur des temps très longs, les mêmes sites peuvent muter plusieurs fois, effaçant les différences accumulées ; 4) la sélection naturelle : peut biaiser l'accumulation des mutations si certaines sont favorables ou défavorables. Les méthodes modernes (horloges bayésiennes, modèles à taux variables) tentent de corriger ces biais.
 De la Loi Zéro aux IA génératives : les lois d'Asimov en question
 Comment naissent et disparaissent les sociétés complexes ?
 Le cerveau face aux IA : chronique d'un organe débordé par le déluge des données
 L’IA a appris à penser : la conscience artificielle apprendra-t-elle à être ?
 L'Obsession du Futur : Quand la prédiction façonne le vivant
 Quelles régions du monde resteront habitables lors de la prochaine ère glaciaire ?
 Évolution rapide: le coup de tonnerre darwinien du 21e siècle
 Déséquilibre Fatal: La Puissance Insoupçonnée de l'Infiniment Petit
 Le Grand Filtre de l'Évolution: la clé du paradoxe de Fermi
 La Dernière Secousse Glaciaire : le Dryas Récent et ses conséquences sur les sociétés préhistoriques
 Pourquoi le tournesol se tourne-t-il vers le soleil? Une réponse par le Lagrangien
 Population mondiale 2026: tendances démographiques par continent
 Pourquoi la vie émerge du déséquilibre et disparaît à l'équilibre thermodynamique
 Le Spectre Électromagnétique et la Vision: Ce que nos yeux perçoivent de notre planète
 Le
Soi et le Non-Soi: Une Lecture Physique Simplifiée de l'Identité
 L’Horloge Moléculaire: Du hasard des mutations à la mesure du temps
 La
Cellule Minimale: L'Émergence Inévitable
 Les Empreintes de White Sands: Premiers Pas d’Amérique
 Homininés:
Apparition, Expansion et Extinctions
 Naissances en Berne: Catastrophe Démographique ou Évolution Naturelle?
 Sélection naturelle vs. Hasard: Pourquoi l’évolution n’est pas une loterie?
 Et si la Vie Partait de la Terre? Une Révolution dans la Théorie de la Panspermie
 La Grande Bifurcation qui va Bouleverser Notre Monde: Survie ou Effondrement?
 Chimie primordiale: Où naissent les premières molécules organiques?
 CO et CO₂:
Deux Gaz, Deux Risques, Deux Mécanismes Biologiques
 Synchronisation Spontanée: un Phénomène Universel, de la Physique au Vivant
 Défi temporel: comment illustrer un milliard d'années?
 Les trois composants indispensables à l'émergence de la vie
 Pourquoi le Genre Homo a frôlé l'extinction il y a 900 000 ans?
 La première étape vers l'émergence de la vie
 La biosphère de l'ombre
 Déclin de l'anthropocentrisme : quand le cosmos relativise notre importance
 La limule,
un fossile vivant!
 Origine de
la vie: Théorie de la panspermie
 Origine de la vie: Théorie des fumeurs blancs
 Pourquoi 37 degrés Celsius?
 Sommes-nous seuls dans le cosmos? Entre science et spéculation
 Traces
de Vie dans la Glace: L’Émergence des Mammouths Préhistoriques
 Le Dryas: Le mini-âge glaciaire qui faucha la mégafaune
 Les Deux Grandes Glaciations: Survivre dans les Océans d’une Terre Gelée
 Régénération chez les Animaux suite à Amputation: La Repousse Organique
 Aux Confins
de la Vie: Mephisto, Ver des Profondeurs Infernales
 Découverte
de buckyballs solides dans l'espace
 La Marche
Humaine: Aux Origines de la Bipédie chez les Hominidés
 Karabo : Une fenêtre sur l'évolution humaine
 Entropie: Qu'est-ce
que le temps?
 Le
passage entre l'inerte et le vivant
 Le
grand récit de la complexité: des particules élémentaires aux premiers organismes
 Le mégapode
utilise la chaleur volcanique
 Ardipithecus:
L'hominidé éthiopien de 4,4 millions d’années
 Sélection Naturelle: La Phalène du Bouleau
 L'Ordovicien:
L'ère des coraux, des trilobites et des graptolites
 L’Eau
liquide, Bien Plus Qu’un Solvant: Un Accélérateur de Réactions Chimiques
 Néandertal:
Le Cousin Disparu de l’Humanité
 Asimo : le premier
humanoïde
 Quelles sont les conditions qui ont permis l’émergence de la vie ?
 Paradoxe de Fermi et caverne de Platon: Sommes-nous seuls ou aveugles?
 Les tardigrades:
Ces créatures indestructibles qui défient les lois de la biologie
 Toumaï: l'un
des plus anciens homininés connus
 L'Arbre
du Vivant: Des milliards d'espèces disparues et une seule communauté ancestrale
 La
Vie dans les Abysses: L'Extême Adaptation des Créatures
 Cyanobactéries
et Crise de l’Oxygène: Une Catastrophe Écologique Primordiale
 De
la Matière à la Vie: La Frontière Floue de l’Émergence Biologique
 La Plus Petite Grenouille du Monde: Secrets Physiologiques d’un Microvertébré
 L'explication du Petit âge glaciaire
 La Lumière de la Vie: une Biosignature révélée par la Lune
 Lumière
Vivante: Les Secrets Éblouissants de la Bioluminescence
 Au delà de nos sens, les grandes révolutions scientifiques
 La
Soupe Primitive: Berceau Chimique de la Vie Terrestre
 Écologie
et effondrement: le cas de l’Île de Pâques
 Les Fractales:
Des structures universelles auto-organisées