


O Relógio Molecular: Do Acaso das Mutations à Medida do Tempo
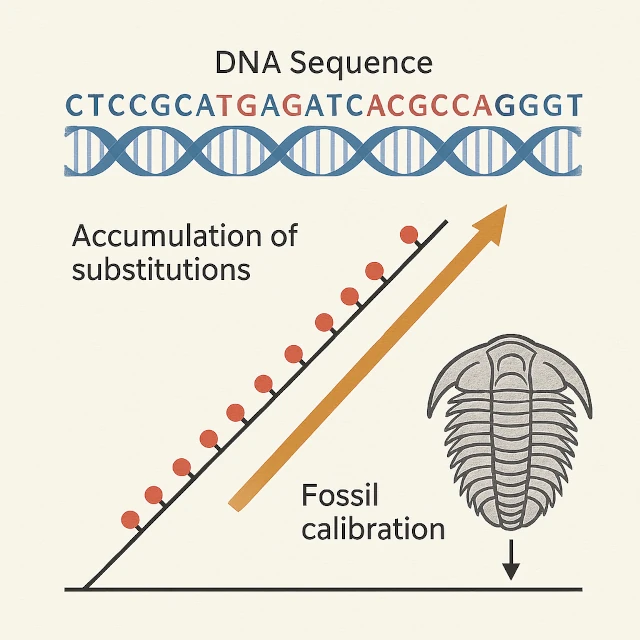
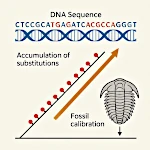
esquema conceitual mostrando uma sequência de DNA, o acúmulo de substituições e a calibração por fóssil.
Fonte da imagem: astronoo.com (nova janela)
O que é o relógio molecular e como permite datar eventos evolutivos?
O relógio molecular é um conceito da biologia evolutiva que estima o tempo decorrido desde a divergência de duas linhagens medindo as diferenças genéticas acumuladas nos seus genomas. O princípio baseia-se na acumulação de substituições neutras a um ritmo relativamente constante. A relação é: T = D / (2μ). Este método permitiu datar eventos como a divergência humano-chimpanzé, a saída de África do Homo sapiens, a domesticação do cão e o surgimento do SARS-CoV-2.
Princípio do Relógio Molecular
O relógio molecular (relógio Molecular) é um conceito revolucionário em biologia evolutiva que permite datar eventos de especiação usando a taxa de acúmulo de mutações no genoma.
A expressão "relógio molecular" designa a possibilidade de estimar o tempo decorrido desde a divergência de duas linhagens, medindo a quantidade de diferenças acumuladas em suas sequências biomoleculares. O princípio baseia-se na ideia de que as substituições neutras se acumulam a um ritmo médio, ritmo que pode ser explorado como um cronômetro.
N.B.:
Uma substituição neutra é uma mudança na sequência de DNA ou proteína que não tem nenhum efeito na sobrevivência ou reprodução do organismo.
Essas substituições não são favorecidas nem eliminadas pela seleção natural e, portanto, acumulam-se de forma aleatória ao longo do tempo.
Em sua forma mais simples, a relação que liga divergência e tempo é dada por \(T = \dfrac{D}{2\mu}\).
Parâmetros do Relógio Molecular
| Símbolo | Nome | Unidade | Significado físico |
|---|---|---|---|
| \(T\) | Tempo de divergência | anos (ou Ma) | Duração decorrida desde que duas linhagens divergiram de um ancestral comum; é a medida de tempo que o relógio molecular permite estimar. |
| \(D\) | Distância genética | substituições/sítio | Proporção média de diferenças acumuladas entre duas sequências homólogas desde sua separação; reflete o número de substituições neutralizadas por evolução independente em cada linhagem. |
| \(\mu\) | Taxa de mutação | substituições/sítio/ano | Frequência com que uma base particular é substituída por outra ao longo de uma unidade de tempo em uma linhagem; é a velocidade do relógio molecular. |
N.B.:
Em biologia evolutiva, uma linhagem designa um conjunto de organismos descendentes uns dos outros por reprodução, formando uma cadeia contínua no tempo.
No contexto do relógio molecular (modelo que permite estimar o tempo decorrido desde uma divergência evolutiva), cada linhagem acumula substituições de forma independente, e a distância genética \(D\) entre duas linhagens corresponde à soma das mudanças ocorridas em cada uma desde seu último ancestral comum.
Aplicações e Datações-Chave
O relógio molecular revolucionou nossa compreensão da evolução, permitindo datar com precisão eventos-chave na história da vida, desde divergências entre grandes grupos taxonômicos até eventos evolutivos recentes.
Ele resolveu, em particular, debates de longa data sobre a cronologia da evolução e forneceu quadros temporais para fenômenos tão variados como o surgimento de novas espécies, migrações humanas, a origem de pandemias e a domesticação de espécies.
Datações-chave da evolução por análise genética
| Evento de divergência | Tempo estimado | Material genético utilizado | Confiabilidade |
|---|---|---|---|
| Eucariotos - Procariotos | 2-3 bilhões de anos | Genes ribossomais | Moderada |
| Origem da fotossíntese | 2,5-3,2 bilhões de anos | Genes fotossintéticos | Moderada |
| Mamíferos - Aves | 310 milhões de anos | Genes conservados | Média |
| Origem das plantas com flores | 300 milhões de anos | Genes cloroplásticos | Média |
| Radiação (diversificação rápida) dos dinossauros | 230-250 milhões de anos | Genes esqueléticos | Moderada |
| Divergência aves - crocodilianos | 240-275 milhões de anos | Genes nucleares | Média |
| Radiação (diversificação rápida) dos mamíferos placentários | 66-100 milhões de anos | DNA mitocondrial e nuclear | Média |
| Cetáceos - Hipopótamos | 50-60 milhões de anos | Genes nucleares | Alta |
| Humano - Chimpanzé | 6-8 milhões de anos | Genoma nuclear e mitocondrial | Alta |
| Camundongo - Rato | 12-24 milhões de anos | Genoma completo | Alta |
| Divergência Neandertal - Humano moderno | 550.000-765.000 anos | Genoma nuclear antigo | Alta |
| Domesticação do cão | 15.000-40.000 anos | DNA mitocondrial | Média |
| Colonização das Américas | 15.000-20.000 anos | Genoma humano completo | Alta |
| Saída da África do Homo sapiens | 60.000-100.000 anos | DNA mitocondrial e cromossomo Y | Alta |
| Domesticação do arroz | 8.000-13.000 anos | Genoma cloroplástico | Alta |
| Emergência do VIH-1 | Início do século XX | Genoma viral completo | Alta |
| Emergência do SARS-CoV-2 | 2019 | Genoma viral completo | Alta |
- Fontes complementares e ferramentas: PubMed / NCBI (nova janela), BEAST (relógios bayesianos) (nova janela), Literatura científica (nova janela).
Limites e Desafios
Apesar de seu poder, o relógio molecular apresenta várias limitações importantes:
- Calibração: Depende da qualidade dos dados fósseis
- Taxas variáveis: A taxa de mutação não é constante entre linhagens
- Saturação: Ao longo de longos períodos, os mesmos sítios podem mutar várias vezes
- Seleção natural: Pode enviesar o acúmulo de mutações neutras
- Fonte: Nature - The molecular clock and evolutionary relationships (nova janela) e Science - Molecular Clocks in Evolution (nova janela).
FAQ: Tudo sobre o relógio molecular
O que é uma "substituição neutra" e porque é central para o relógio molecular?
Uma substituição neutra é uma mutação pontual numa sequência de ADN ou proteína que não tem efeito na sobrevivência ou reprodução do organismo. Estas mutações não são favorecidas nem eliminadas pela seleção natural; acumulam-se de forma aleatória e regular ao longo do tempo. É esta regularidade estatística que permite utilizá-las como um "cronómetro" molecular.
Como é que os cientistas "calibram" o relógio molecular?
A calibração do relógio molecular baseia-se em pontos de referência temporais independentes, principalmente fornecidos pelos fósseis. Por exemplo, se o fóssil mais antigo conhecido de um grupo data de cerca de 66 milhões de anos, usa-se essa idade como ponto de calibração para calcular a taxa de mutação μ. A distância genética D medida entre duas espécies é dividida por 2×T para obter μ. Esta taxa calibrada é depois aplicada a outros grupos. Os métodos modernos usam modelos bayesianos que integram múltiplos fósseis e consideram variações de taxa.
Quais são as principais limitações do relógio molecular?
O relógio molecular tem várias limitações importantes: 1) dependência da calibração; 2) taxas de mutação variáveis entre linhagens; 3) saturação em tempos muito longos; 4) seleção natural que pode enviesar a acumulação de mutações. Os métodos modernos tentam corrigir estes enviesamentos.
 Da Lei Zero às IAs generativas: as leis de Asimov em questão
 Como nascem e desaparecem as sociedades complexas?
 O cérebro face às IA: crónica de um órgão sobrecarregado pelo dilúvio de dados
 A IA aprendeu a pensar: a consciência artificial aprenderá a ser?
 A Obsessão pelo Futuro: Quando a predição molda o vivo
 Quais regiões do mundo permanecerão habitáveis durante a próxima era glacial?
 Evolução rápida: o raio darwiniano do século 21
 Desequilíbrio Fatal: O Poder Insuspeito do Infinitamente Pequeno
 O Grande Filtro da Evolução: a chave do paradoxo de Fermi
 O Último Choque Glacial: O Dryas Recente e suas consequências nas sociedades pré-históricas
 Por que o girassol vira-se para o Sol? Uma resposta pelo Lagrangiano
 População mundial 2026: tendências demográficas por continente
 Por que a vida emerge do desequilíbrio e desaparece no equilíbrio termodinâmico
 O Espectro Eletromagnético e a Visão: O que nossos olhos percebem do nosso planeta
 Próprio
e Não-Próprio: Uma Leitura Física Simplificada da Identidade
 O Relógio Molecular: Do Acaso das Mutations à Medida do Tempo
 A
Célula Mínima: A Emergência Inevitável
 As Pegadas de White Sands: Primeiros Passos da América
 Hominíneos:
Aparecimento, Expansão e Extinções
 Nascimentos em Declínio: Catástrofe Demográfica ou Evolução Natural?
 Seleção Natural vs. Acaso: Por que a Evolução não é uma Loteria?
 E se a Vida Partisse da Terra? Uma Revolução na Teoria da Panspermia
 A Grande Bifurcação que vai Revolucionar o Nosso Mundo: Sobrevivência ou Colapso?
 Química primordial: Onde nascem as primeiras moléculas orgânicas?
 CO e CO₂:
Dois Gases, Dois Riscos, Dois Mecanismos Biológicos
 Sincronização Espontânea: um Fenômeno Universal, da Física ao Vivo
 Desafio temporal: como ilustrar um bilhão de anos?
 Os Três Componentes Essenciais para a Emergência da Vida
 Por que o Gênero Homo Esteve à Beira da Extinção Há 900.000 Anos?
 O primeiro passo para o surgimento da vida
 A biosfera de sombra
 Declínio do antropocentrismo: quando o cosmos relativiza a nossa importância
 O caranguejo-ferradura,
um fóssil vivo!
 Origem da vida
na Terra: teoria da Panspermia
 Origem da Vida na Terra: Teoria dos Fumadores Brancos
 Por que 37 graus Celsius?
 Estamos sozinhos no cosmos? Entre ciência e especulação
 Rastros
de Vida no Gelo: O Surgimento dos Mamutes Pré-Históricos
 O Dryas: A mini era glacial que dizimou a megafauna
 As Duas Grandes Glaciações: Sobreviver nos Oceanos de uma Terra Gelada
 Regeneração em Animais após Amputação: O Recrescimento Orgânico
 Nos Confins
da Vida: Mephisto, Verme das Profundezas Infernais
 Descoberta
de fulerenos sólidos no espaço
 A Marcha Humana:
As Origens do Bipedalismo nos Hominídeos
 A
passagem entre o inerte e o vivo
 Entropia: O
que é o Tempo?
 A
Grande Narrativa da Complexidade: Das Partículas Elementares aos Primeiros Organismos
 Karabo: Uma janela para a evolução humana
 Megapod usa
calor vulcânico
 Ardipithecus:
O hominídeo etíope de 4,4 milhões de anos
 Seleção Natural: A Mariposa do Bétula
 O Ordoviciano:
A era dos corais, trilobitas e graptólitos
 Água Líquida,
Muito Mais Que um Solvente: Um Acelerador de Reações Químicas
 Neandertal:
O Primo Desaparecido da Humanidade
 ASIMO: O primeiro
humanoide
 Quais são as condições que permitiram o aparecimento da vida?
 Paradoxo de Fermi e caverna de Platão: Estamos sozinhos ou cegos?
 Tardígrados:
Criaturas indestrutíveis que desafiam as leis da biologia
 Toumaï: Um
dos hominíneos mais antigos conhecidos
 A
Árvore da Vida: Bilhões de espécies extintas e uma única comunidade ancestral
 A Vida
nas Zonas Abissais: A Adaptação Extrema das Criaturas
 Cianobactérias
e a Crise do Oxigênio: Uma Catástrofe Ecológica Primordial
 Da
Matéria à Vida: A Fronteira Difusa da Emergência Biológica
 O Sapo Mais Pequeno do Mundo: Segredos Fisiológicos de um Microvertebrado
 A explicação da Pequena Idade do Gelo
 A Luz da Vida: uma Biossignatura Revelada pela Lua
 Luz
Viva: Os Segredos Deslumbrantes da Bioluminescência
 Além dos nossos sentidos, as grandes revoluções científicas
 A
Sopa Primordial: Berço Químico da Vida Terrestre
 População Mundial: De Um Bilhão de Humanos à Saturação Demográfica
 Ecologia
e colapso: o caso da Ilha de Páscoa
 Fractais:
Estruturas Universais Auto-organizadas