

CO und CO₂: Zwei Gase, zwei Risiken, zwei biologische Mechanismen
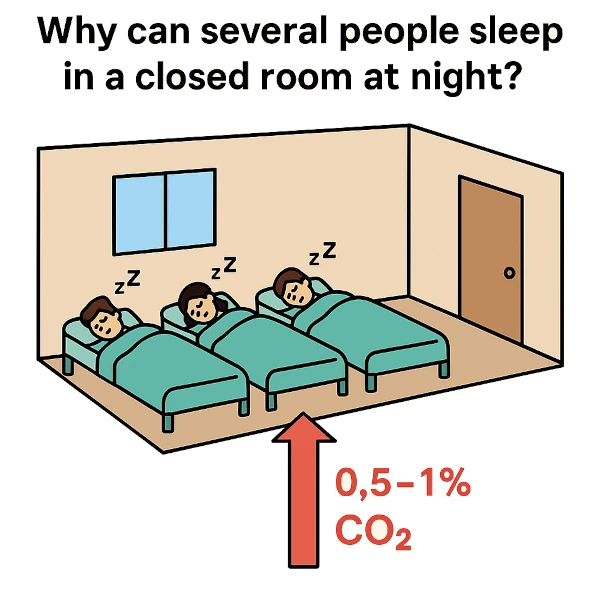
Beschreibung des Bildes: Kohlenmonoxid (CO) und Kohlendioxid (CO₂): Warum ist das eine bei niedrigen Dosen tödlich und das andere tolerierbar? Auch im geschlossenen Raum können mehrere Personen problemlos in einem Raum schlafen, da die erzeugte CO₂-Menge gering bleibt. Bildquelle:astronoo.com (neues Fenster)
Zwei Gase, nur ein Atom Unterschied
DERKohlenmonoxid(CO) und dieKohlendioxid(CO₂) sind zwei einfache Verbindungen aus Kohlenstoff und Sauerstoff, deren physiologische Eigenschaften sich jedoch grundlegend unterscheiden. Während CO in sehr geringen Konzentrationen ein hochgiftiges Gas ist, ist CO₂ ein Gas, das unser Stoffwechsel ständig produziert und in gewissen Grenzen toleriert. Der einzige strukturelle Unterschied zwischen diesen beiden Molekülen besteht jedoch in der Anwesenheit eines zusätzlichen Sauerstoffatoms im CO₂.
Physik der chemischen Bindung
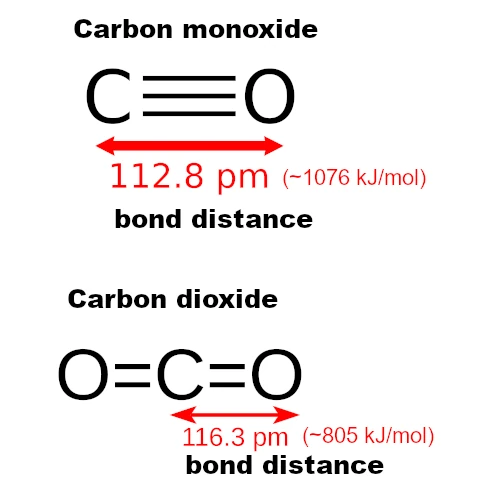
DERCOenthält nur zwei Atome (Kohlenstoff und Sauerstoff), daher ist seine Geometrie linear (eine einzige Ausrichtungsachse). Die Atome sind in einer geraden Linie ausgerichtet: C–≡–O (zwei Atome ausgerichtet).
DERCO₂ist seinerseits ebenfalls linear, aber symmetrisch und unpolar, mit zwei Doppelbindungen: O=C=O (drei Atome in einer geraden Linie).
- Je größer der Unterschied in der Elektronegativität ist, desto stärker verformt sich die Elektronenwolke in Richtung des elektronegativeren Atoms und erzeugt eine polare Bindung.
- Die Bindungen in CO und CO₂ haben den gleichen Unterschied in der Elektronegativität (0,89), aber die Molekülgeometrie macht den entscheidenden Unterschied. CO ist polar (Netto-Dipolmoment), CO₂ ist unpolar (Symmetrie-Dipolmoment Null).
- Je kürzer eine Bindung ist, desto stärker ist sie, d. h. desto mehr Energie ist erforderlich, um sie aufzubrechen.
- In CO ist die C≡O-Bindung sehr kurz (~112,8 pm) und weist eine hohe Bindungsenergie (~1076 kJ/mol) auf, was charakteristisch für eine Dreifachbindung ist.
- In CO₂ sind die C=O-Bindungen länger (~116 pm) und schwächer als die in CO, bleiben aber relativ stabil (Energie ~805 kJ/mol).
Dieser Strukturunterschied verändert die chemische Reaktivität, die Wechselwirkung mit Biomolekülen und damit die physiologische Toxizität.
Toxizität im Zusammenhang mit der Affinität zu Hämoglobin
Die Toxizität von CO beruht auf seiner sehr starken Affinität zu Hämoglobin, die etwa 230 bis 300 Mal größer ist als die von Sauerstoff. Sobald CO an Hämoglobin gebunden ist und Carboxyhämoglobin (HbCO) bildet, verhindert es die Bindung von O₂ und beeinträchtigt dessen Freisetzung in das Gewebe, was zu schwerer Hypoxie führt. Bei 0,1 % (1000 ppm) CO in der Luft kann eine Person innerhalb von Minuten das Bewusstsein verlieren.
Andererseits bindet CO₂ nicht in gleicher Weise an Hämoglobin. Es wird in den Mitochondrien bei der Zellatmung produziert, teilweise als Bikarbonat \( \text{HCO₃⁻} \) transportiert und über die Lunge ausgeatmet. Dieses Gas spielt sogar eine Schlüsselrolle bei der Regulierung des Blut-pH-Wertes.
CO₂: ein physiologisches Gas… in kontrollierter Dosis
Obwohl es sich um einen Stoffwechselabfall handelt, ist Kohlendioxid in geringen Konzentrationen nicht grundsätzlich toxisch. Wenn es jedoch 2-3 % übersteigt, stört es das Säure-Basen-Gleichgewicht, indem es Kohlensäure \( \text{CO₂ + H₂O ⇌ H₂CO₃ ⇌ H⁺ + HCO₃⁻}\) bildet, was zu einer respiratorischen Azidose führt. Erst ab 5-8 % CO₂ in der Luft beobachten wir schwerwiegende neurologische Auswirkungen und ein lebenswichtiges Risiko.
Warum können mehrere Personen problemlos in einem geschlossenen Schlafzimmer schlafen?
Ab 2-3 % wird CO₂ für den menschlichen Körper giftig, bei mehr als 5 % in der Atemluft kann es schwerwiegende und potenziell tödliche Folgen haben.
Ein ruhender Erwachsener atmet etwa 200 ml CO₂ pro Minute aus. Bei 8 Stunden Schlaf erzeugt jeder Mensch pro Nacht etwa 90–100 Liter CO₂.
Nehmen wir einen Raum mit einer Fläche von 15 m² und einer Deckenhöhe von 2,5 m, das Gesamtvolumen = 37.500 L. Das von einer Person ausgeatmete CO₂ beträgt: \(\frac{100\ \text{L}}{37\,500\ \text{L}} = 0{,}0027 = 0{,}27\%\) Zugabe von 0,27 % CO₂ im Raum über eine ganze Nacht, ohne Lüftung.
Außenluft enthält ~0,04 % CO₂. In einem geschlossenen Raum mit 2 Personen kann die Rate zwischen 0,2 % und 0,5 % (also 2000–5000 ppm) ansteigen. Dieser Wert bleibt unterhalb der pathologischen Schwellenwerte (die ersten Symptome einer Hyperkapnie beginnen bei etwa 2–3 %).
Selbst bei mehreren Personen bleibt CO₂ in einer typischen Nacht deutlich unter den toxischen Grenzwerten, es sei denn, der Raum ist extrem klein, vollständig abgedichtet und weist keine Luftlecks auf (was selten vorkommt).
Beispiele, bei denen ein geringfügiger struktureller oder atomarer Unterschied zu völlig unterschiedlichen Effekten führt
Ethanol (C₂H₅OH) vs. Dimethylether (CH₃OCH₃)
- Ethanol ist trinkbar und wird von der Leber verstoffwechselt.
- Dimethylether ist in hohen Dosen ein giftiges Anästhesiegas, das nicht auf den gleichen Wegen verstoffwechselt wird.
Glucose vs. Galactose, gleiche Rohformel (C₂H₆O)
- In Glucose befindet sich die –OH-Gruppe von Kohlenstoff 4 auf der rechten Seite. In Galactose befindet sich dasselbe –OH auf der linken Seite.
- Glukose ist die Hauptquelle der Zellenergie.
- Für die Metabolisierung von Galactose ist ein spezifisches Enzym (GALT) erforderlich. Seine Anreicherung verursacht Galaktosämie, eine schwere Erkrankung bei Säuglingen.
Wenn die molekulare Chemie unberechenbar wird!
Eine scheinbar geringfügige Änderung der Molekülstruktur – etwa das Hinzufügen oder Entfernen eines einzelnen Atoms – kann zu völlig unterschiedlichen oder sogar gegensätzlichen biochemischen Wirkungen führen.
Dies zeigt, wie aus feinen Molekülstrukturen chemische Eigenschaften entstehen. Und dies unterstreicht, warum die Vorhersage chemischer und biologischer Wechselwirkungen komplex ist: Sie hängt nicht nur von den vorhandenen Elementen ab, sondern auch von deren räumlicher Anordnung, Polarität, Symmetrie, Molekülorbitalen usw.
 Die Zukunftsbessenheit: Wenn Vorhersage das Lebendige prägt
 Welche Regionen der Welt bleiben während der nächsten Eiszeit bewohnbar?
 Schnelle Evolution: Darwins Donnerschlag im 21. Jahrhundert
 Tödliches Ungleichgewicht: Die unvorhergesehene Macht des Unendlich Kleinen
 Der Große Filter der Evolution: Der Schlüssel zum Fermi-Paradoxon
 Warum dreht sich die Sonnenblume zur Sonne? Eine Antwort durch die Lagrange-Funktion
 Weltbevölkerung 2026: Demografische Trends nach Kontinenten
 Warum das Leben aus dem Ungleichgewicht entsteht und im thermodynamischen Gleichgewicht verschwindet
 Das elektromagnetische Spektrum und das Sehen: Was unsere Augen von unserem Planeten wahrnehmen
 Selbst und Nicht-Selbst: Eine Vereinfachte Physikalische Lesart der Identität
 Die Molekulare Uhr: Vom Zufall der Mutationen zur Zeitmessung
 Die Minimale Zelle: Das Unvermeidliche Entstehen
 Die Spuren von White Sands: Erste Schritte Amerikas
 Homininen: Entstehung, Ausbreitung und Aussterben
 Geburtenrückgang: Demografische Katastrophe oder natürliche Entwicklung?
 Natürliche Selektion vs. Zufall: Warum Evolution kein Glücksspiel ist
 Wenn das Leben von der Erde ausgeht: Revolution in der Panspermie-Theorie
 Die große Bifurkation, die unsere Welt verändern wird: Überleben oder Zusammenbruch?
 Urmoleküle: Wo die ersten organischen Moleküle entstehen
 CO und CO₂: Zwei Gase, zwei Risiken, zwei biologische Mechanismen
 Spontane Synchronisation: Ein universelles Phänomen von Physik bis Leben
 Zeitliche Herausforderung: Wie man eine Milliarde Jahre veranschaulicht
 Die drei wesentlichen Bestandteile für die Entstehung des Lebens
 Warum die Gattung Homo vor 900.000 Jahren fast ausgestorben wäre
 Der erste Schritt zur Entstehung des Lebens
 Die Biosphäre des Schattens
 Rückgang des Anthropozentrismus
 Die Limule, ein lebendes Fossil!
 Herausforderung und Bedrohung der künstlichen Intelligenz
 Ursprung des Lebens: Panspermie-Theorie
 Ursprung des Lebens: Theorie der Weißen Raucher
 Warum 37 Grad Celsius?
 Sind wir allein im Kosmos? Zwischen Wissenschaft und Spekulation
 Spuren des Lebens im Eis: Auftauchen prähistorischer Mammuts
 Der Dryas: Mini-Eiszeit, die die Megafauna vernichtete
 Die zwei großen Eiszeiten: Überleben in den Ozeanen einer gefrorenen Erde
 Regeneration bei Tieren nach Amputation: Organisches Nachwachsen
 Am Rande des Lebens: Mephisto, Wurm der Höllentiefe
 Entdeckung fester Buckyballs im Weltraum
 Der menschliche Gang: Ursprung der Bipedie bei Hominiden
 Karabo: Ein Fenster zur menschlichen Evolution
 Entropie: Was ist Zeit?
 Der Übergang zwischen Unbelebtem und Lebendigem
 Die große Erzählung der Komplexität: Von Elementarteilchen zu den ersten Organismen
 Der Megapode nutzt vulkanische Wärme
 Ardipithecus: Äthiopischer Hominide vor 4,4 Millionen Jahren
 Natürliche Selektion: Der Birkenprachtspinner
 Ordovizium: Zeitalter der Korallen, Trilobiten und Graptolithen
 Flüssiges Wasser: Viel mehr als ein Lösungsmittel – Beschleuniger chemischer Reaktionen
 Neandertal: Der verschwundene Cousin der Menschheit
 ASIMO: Der erste Humanoide
 Welche Bedingungen ermöglichten das Entstehen des Lebens?
 Fermi-Paradox und Platons Höhle: Sind wir allein oder blind?
 Tardigraden: Unzerstörbare Kreaturen, die die Gesetze der Biologie herausfordern
 Toumaï: Einer der ältesten bekannten Homininen
 Der Baum des Lebens: Milliarden ausgestorbener Arten und eine einzige Ursprungsgemeinschaft
 Leben in der Tiefsee: Extreme Anpassungen der Kreaturen
 Cyanobakterien und Sauerstoffkrise: Eine primordiale ökologische Katastrophe
 Von der Materie zum Leben: Die verschwommene Grenze biologischer Entstehung
 Der kleinste Frosch der Welt: Physiologische Geheimnisse eines Mikrovertebraten
 Die Erklärung der Kleinen Eiszeit
 Das Licht des Lebens: Eine durch den Mond enthüllte Biosignatur
 Lebendiges Licht: Die strahlenden Geheimnisse der Biolumineszenz
 Jenseits unserer Sinne: Die großen wissenschaftlichen Revolutionen
 Die Ursuppe: Chemische Wiege des Lebens auf der Erde
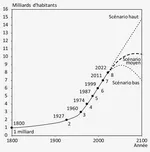 Weltbevölkerung: Vom ersten Milliard Menschen bis zur demografischen Sättigung
 Ökologie und Zusammenbruch: Der Fall der Osterinsel
 Fraktale: Selbstorganisierte universelle Strukturen