

CO と CO₂: 2 つのガス、2 つのリスク、2 つの生物学的メカニズム
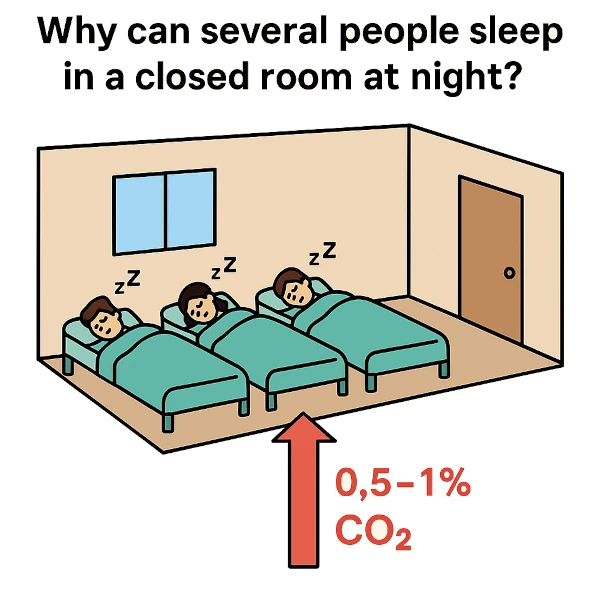
一酸化炭素 (CO) と二酸化炭素 (CO₂): なぜ一方は低用量で致死的で、もう一方は許容できるのでしょうか? CO₂の発生量が少ないため、部屋を閉め切っていても、数人で問題なく眠ることができます。 画像出典:astronoo.com (新しいウィンドウ)
2 つの気体、違いは原子 1 つだけ
ザ一酸化炭素(CO) と二酸化炭素(CO₂) は炭素と酸素の 2 つの単純な化合物ですが、それらの生理学的特性は根本的に異なります。 CO は非常に低濃度では非常に有毒なガスですが、CO₂ は私たちの代謝によって常に生成されるガスであり、一定の範囲内で許容されます。 ただし、これら 2 つの分子の唯一の構造上の違いは、CO2 に追加の酸素原子が存在することです。
化学結合の物理学
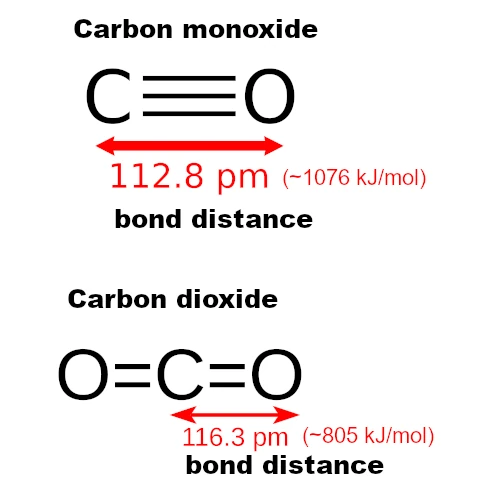
ザCO原子 (炭素と酸素) が 2 つだけ含まれているため、その幾何学形状は直線 (単一の配向軸) です。 原子は直線に並んでいます: C–≡–O (2 つの原子が並んでいます)。
ザCO₂一方、 も線形ですが対称で非極性であり、2 つの二重結合: O=C=O (直線上の 3 つの原子) を持ちます。
- 電気陰性度の差が大きいほど、電子雲はより電気陰性度の高い原子に向かって変形し、極性結合が生成されます。
- CO と CO₂ の結合の電気陰性度の差は同じ (0.89) ですが、分子の幾何学的形状がすべての違いを生み出します。 CO は極性 (正味双極子モーメント)、CO₂ は非極性 (対称性により双極子モーメントがゼロ) です。
- 結合が短いほど結合は強くなります。つまり、結合を解除するにはより多くのエネルギーが必要になります。
- CO では、C≡O 結合は非常に短く (~112.8 pm)、三重結合の特徴である高い結合エネルギー (~1076 kJ/mol) を持っています。
- CO₂ では、C=O 結合は CO よりも長く (約 116 pm)、弱いですが、比較的安定しています (エネルギー約 805 kJ/mol)。
この構造の違いにより、化学反応性、生体分子との相互作用、ひいては生理学的毒性が変化します。
ヘモグロビンに対する親和性に関係する毒性
CO の毒性は、ヘモグロビンに対する非常に強い親和性 (酸素の約 230 ~ 300 倍) に由来します。 ヘモグロビンに結合してカルボキシヘモグロビン (HbCO) を形成すると、CO は O2 の結合を妨げ、組織への放出を阻害し、重度の低酸素症を引き起こします。 空気中の 0.1% (1000 ppm) CO では、人は数分以内に意識を失う可能性があります。
一方、CO₂ は同じようにヘモグロビンに結合しません。 細胞呼吸中にミトコンドリアで生成され、一部は重炭酸塩 \( \text{HCO₃⁻} \) として輸送され、肺から吐き出されます。 このガスは血液の pH の調整にも重要な役割を果たします。
CO₂: 生理学的ガス…制御された量で
二酸化炭素は代謝廃棄物ですが、低濃度では本質的に有毒ではありません。 しかし、2〜3%を超えると、炭酸 \( \text{CO₂ + H₂O ⇌ H₂CO₃ ⇌ H⁺ + HCO₃⁻}\) を形成して酸塩基バランスが崩れ、呼吸性アシドーシスを引き起こします。 深刻な神経学的影響と重大なリスクが観察されるのは、空気中の CO₂ が 5 ~ 8% を超える場合のみです。
閉め切った寝室で何人でも問題なく寝られるのはなぜでしょうか?
CO₂ は、吸入空気中の 2 ~ 3% から人体に有毒となり、5% を超えると重篤で致命的な影響を与える可能性があります。
安静時の成人は 1 分間に約 200 mL の CO₂ を吐き出します。 8 時間の睡眠で、人は一晩に約 90 ~ 100 L の CO₂ を生成します。
表面積15㎡、天井高2.5m、総容積= 37,500Lの部屋を考えてみましょう。 人が吐き出す CO₂ は、\(\frac{100\ \text{L}}{37\,500\ \text{L}} = 0{,}0027 = 0{,}27\%\) を表します。 換気なしで一晩かけて室内に 0.27% CO₂ を添加。
屋外の空気には約 0.04% の CO₂ が含まれています。 密室で 2 人の場合、この割合は 0.2% ~ 0.5% (つまり 2000 ~ 5000 ppm) 上昇する可能性があります。 このレベルは依然として病理学的閾値を下回っています(高炭酸ガス血症の最初の症状は約 2 ~ 3% から始まります)。
複数の人がいる場合でも、部屋が非常に狭く、完全に密閉され、空気漏れがない限り (これはまれですが)、通常の夜の CO₂ は有毒閾値をはるかに下回っています。
わずかな構造または原子の違いが根本的に異なる効果をもたらす例
エタノール (C₂H₅OH) 対 ジメチルエーテル (CH₃OCH₃)
- エタノールは飲むことができ、肝臓で代謝されます。
- ジメチルエーテルは、高用量では有毒な麻酔ガスであり、同じ経路では代謝されません。
グルコースとガラクトース、同じ粗製式 (C₂H₆O)
- グルコースでは、炭素 4 の –OH 基が右側にあります。ガラクトースでは、これと同じ –OH が左側にあります。
- グルコースは細胞エネルギーの主な供給源です。
- ガラクトースの代謝には特定の酵素 (GALT) が必要です。その蓄積は、乳児の重篤な病気であるガラクトース血症を引き起こします。
分子化学が予測不可能になるとき!
分子構造における一見小さな変化(単一原子の追加または除去など)が、大きく異なる、または相反する生化学的効果を引き起こす可能性があります。
これは、微細な分子構造から化学的性質がどのように現れるかを示しています。そしてこれは、化学的および生物学的相互作用の予測がなぜ複雑であるかを強調しています。それは、存在する元素だけでなく、それらの空間的配置、極性、対称性、分子軌道などにも依存します。
 未来への執着:予測が生命を形作るとき
 次期氷河期にどの地域が居住可能か?
 21世紀のダーウィンの雷鳴:加速する進化
 致命的不均衡:極小の物質の予想外の力
 進化の大フィルター:フェルミのパラドックスの鍵
 なぜヒマワリは太陽の方を向くのか?ラグランジアンによる解答
 世界人口2026:大陸別の人口動向
 なぜ生命は不均衡から生まれ、熱力学的平衡で消滅するのか
 電磁スペクトルと視覚:私たちの目が捉える地球の姿
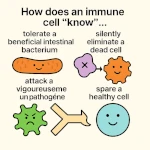 自己と非自己:物理法則から見たアイデンティティの簡単な解説
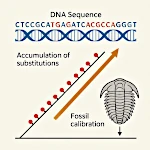 分子時計:突然変異の偶然性から時間の測定へ
 最小細胞:避けられない出現
 ホワイトサンズの足跡:アメリカ大陸の最初の一歩
 ホミニン:出現、拡散、絶滅
 文明の大崩壊:重要な時期と原因
 出生率の低下:人口災害か自然な進化か?
 自然選択 vs 偶然:なぜ進化は宝くじではないのか?
 生命が地球から始まったら?パンスペルミア理論の革命
 世界を激変させる大分岐:生存か崩壊か?
 原始化学:最初の有機分子はどこで生まれたのか?
 COとCO₂:2つのガス、2つのリスク、2つの生物学的メカニズム
 自発的同期:物理学から生命までの普遍的現象
 時間的課題:10億年をどのように視覚化するか?
 生命の誕生に不可欠な3つの要素
 なぜホモ属は90万年前に絶滅の危機に瀕したのか?
 影の生物圏
 人間中心主義の衰退
 カブトガニ:生きている化石!
 人工知能の課題と脅威
 生命の起源:パンスペルミア理論
 生命の起源:ホワイトスモーカー理論
 なぜ37度セルシウスなのか?
 私たちは宇宙で孤独なのか?科学と推測の間で
 氷の中の生命の痕跡:先史時代のマムートの出現
 ドリアス期:メガファウナを絶滅させたミニ氷河期
 2つの大氷河期:凍った地球の海で生き残る
 動物の切断後の再生:器官の再生
 生命の果て:地底のメフィスト、深淵の虫
 宇宙で固体フラーレンが発見される
 人間の歩行:原人の二足歩行の起源
 カラボ:人間進化の窓
 エントロピー:時間とは何か?
 無生物から生命への移行
 複雑さの物語:素粒子から最初の生物まで
 メガポード:火山の熱を利用する
 アルディピテクス:440万年前のエチオピアの原人
 自然選択:カバマダラの例
 オルドビス紀:サンゴ、三葉虫、放散虫の時代
 液体の水:単なる溶媒以上、化学反応の促進剤
 ネアンデルタール人:人類の失われたいとこ
 ASIMO:最初のヒューマノイド
 生命の誕生を可能にした条件は何か?
 フェルミのパラドックスとプラトンの洞窟:私たちは孤独か、それとも盲目か?
 クマムシ:生物学の法則に挑戦する不死身の生物
 トゥーマイ:最古の原人の一つ
 生命の樹:数十億の絶滅種と単一の祖先コミュニティ
 深海の生命:極限の適応を遂げた生物
 シアノバクテリアと酸素危機:原始的な環境災害
 物質から生命へ:生物学的出現の曖昧な境界
 世界最小のカエル:微小脊椎動物の生理的秘密
 小氷期の説明
 生命の光:月が明かすバイオシグネチャー
 生きている光:生物発光の驚異的な秘密
 感覚を超えて:科学の大革命
 原始のスープ:地球生命の化学的揺籃
 世界人口:10億人から人口飽和へ
 生態学と崩壊:イースター島の事例
 フラクタル:自己組織化された普遍的構造