


シアノバクテリアと酸素危機: 原始的な生態学的大惨事
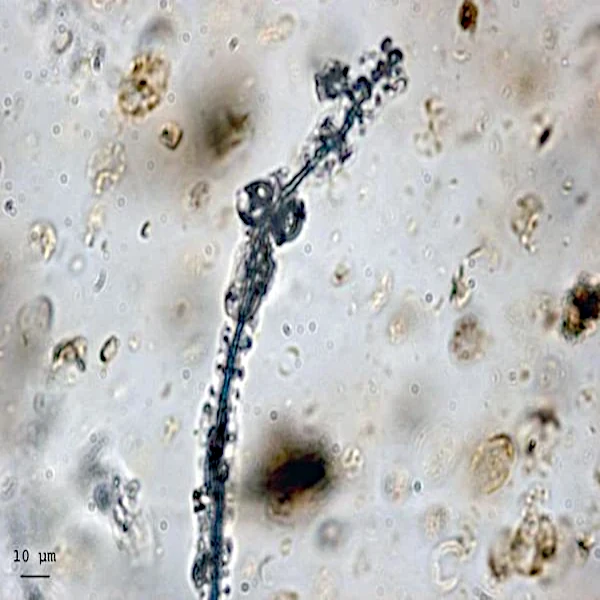
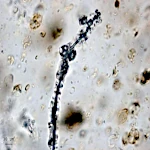
シャラント・マリティーム (フランス) で発見された、9,500 万年から 1 億年前の琥珀の塊に含まれる、シアノバクテリア (Palaeocolteronema cenomanensis) の美しい青色のフィラメント。 保存性は抜群で、フィコシアニンによる青色の発色がはっきりと認識できます。 画像出典: CNRS-INSU、レンヌ I.
微生物によって引き起こされる惑星大変動
約 24 億年前、地質学的および生物学的な大きな出来事が地球の歴史を変えました。大酸化、GOE(大酸化イベント)とも呼ばれます。この期間以前、地球の大気には遊離酸素 \((O_2)\) がほとんどなく、メタン、アンモニア、二酸化炭素などのガスが大半を占めていました。この劇的な変化は、光合成微生物のグループによって引き起こされました。シアノバクテリア。太陽エネルギーを利用して水 \((H_2O)\) を酸化し、酸素を放出することで、大気の組成を不可逆的に変化させました。
シアノバクテリア: 酸素発生型光合成の先駆者
地球の歴史の初期の登場
ザシアノバクテリア「藍藻」とも呼ばれる(真核生物の意味での藻類ではありませんが)、27億年。彼らは、実践することができる最初の既知の生命体です。酸素発生型光合成、つまり、太陽エネルギーを使って水を\((H_2O)\)を酸化して酸素を放出する光合成です。
高度な光合成機構
チラコイド膜に組み込まれた彼らの光合成装置は、2 つの光システム (PSII と PSI) を直列に使用します。これは、酸素発生性細菌の機構よりも複雑です。この生体エネルギー革新により、豊富な資源 (水) を電子供与体として利用できるようになり、酸素分子 \((O_2)\) の大量生産が可能になりました。
ストロマトライトの化石の痕跡
シアノバクテリアは形成することができます微生物マット、と呼ばれるストロマトライト、先カンブリア紀の炭酸塩岩に化石の痕跡を残しました。それらの代謝は、まず海洋を、次に大気を酸素で豊かにし、好気呼吸の進化と複雑な生物の出現への道を切り開き、陸上環境を大きく変えました。
生物圏における永続的な遺産
今日でもシアノバクテリアは生態学的に基本的な役割を果たしています。シアノバクテリアは水生生態系における窒素固定 \((N_2)\) や酸素の生成に関与しており、特定の種は地衣類、シダ、コケと共生しています。彼らの生化学的遺産は、植物の葉緑体、祖先のシアノバクテリアと原始的な真核生物の内部共生から生じます。
地球の酸素化の年表
| 期間 | イベント | 推定所要時間 | 大きな影響 |
|---|---|---|---|
| ~2.7Ga | 最初のシアノバクテリアの出現 | — | 酸素発生型光合成の開始 |
| ~2.5 – 2.45 Ga | 海洋の酸化(BIFの形成) | ~50Ma | 海洋における酸化鉄の沈殿 |
| ~2.45 – 2.1 Ga | 大酸化 (GOE) | ~350Ma | 大気中のO₂の大幅な増加 |
| 2.1~0.8Ga | 停滞(O₂ レベルの低下) | ~1.3Ga | 酸素の生成と消費のバランス |
| ~800 – 600 Ma | 新原生代の酸化現象 (NOE) | ~200Ma | O₂のさらなる増加、複雑な生命への準備 |
| ~600 – 541 Ma | エディアカラ | ~60Ma | オゾンの形成と巨視的多細胞生物の出現 |
酸素化のメカニズム
シアノバクテリアによって行われる酸素発生型光合成は、全体的な反応に従います。 \(6CO_2 + 6H_2O + \text{光} \rightarrow C_6H_{12}O_6 + 6O_2\)
当初、生成された酸素は大気中に蓄積されませんでした。これは、酸素が鉄\((Fe^{2+})\)などの海洋に存在する還元元素と反応し、縞状鉄層(BIF:縞状鉄層)の堆積物を形成したためです。これらの貯留層が飽和して初めて、酸素が大気中に漏れ始め、惑星の化学が大きく変化しました。
地質学的および生物学的影響
大気中に遊離酸素が出現すると、次のような複数の影響が生じます。
- 地表の鉱物の大規模な酸化。
- 大気中のメタン(温室効果ガス)の破壊による地球規模の寒冷化。
- 嫌気性生物の生物学的危機。
- オゾンシールド \((O_3)\) の出現により、生命が地表および陸域に定着できるようになります。
人生の歴史の転換点
大酸化は、生物学的多様性の爆発の前提条件として見られることがよくあります。 酸素はより効率的な代謝(好気呼吸)の発達を可能にし、より複雑な生物への進化を促進しました。 しかし、この変化は瞬間的なものではありませんでした。大気は、ずっと後の、約 6 億年前のエディアカラ紀の夜明け (現在から 6 億 3,500 万年前から 5 億 4,100 万年前) まで、今日のレベルに達しませんでした。
大酸化前後の比較表
| 設定 | GOEの前に | GOE後 |
|---|---|---|
| 酸素 \((O_2)\) | %<0.001% | ~1 ~ 2% (その後徐々に増加) |
| メタン \((CH_4)\) | ~1% | %<0.0002% |
| 二酸化炭素 \((CO_2)\) | >10% | %<1% |
| オゾンの存在 \((O_3)\) | 存在しない | 成層圏での出現 |
| 支配的な人生 | 厳密な嫌気性菌 | 出現する好気性菌 |
 第零法則から生成AIへ:問われるアシモフの法則
 複雑な社会はどのように誕生し、消滅するのか?
 AIに直面する脳:データ洪水に圧倒される器官のクロニクル
 AIは考えることを学んだ:人工意識は存在することを学ぶのか?
 未来への執着:予測が生命を形作るとき
 次期氷河期にどの地域が居住可能か?
 21世紀のダーウィンの雷鳴:加速する進化
 致命的不均衡:極小の物質の予想外の力
 進化の大フィルター:フェルミのパラドックスの鍵
 なぜヒマワリは太陽の方を向くのか?ラグランジアンによる解答
 世界人口2026:大陸別の人口動向
 なぜ生命は不均衡から生まれ、熱力学的平衡で消滅するのか
 電磁スペクトルと視覚:私たちの目が捉える地球の姿
 自己と非自己:物理法則から見たアイデンティティの簡単な解説
 分子時計:突然変異の偶然性から時間の測定へ
 最小細胞:避けられない出現
 ホワイトサンズの足跡:アメリカ大陸の最初の一歩
 ホミニン:出現、拡散、絶滅
 出生率の低下:人口災害か自然な進化か?
 自然選択 vs 偶然:なぜ進化は宝くじではないのか?
 生命が地球から始まったら?パンスペルミア理論の革命
 世界を激変させる大分岐:生存か崩壊か?
 原始化学:最初の有機分子はどこで生まれたのか?
 COとCO₂:2つのガス、2つのリスク、2つの生物学的メカニズム
 自発的同期:物理学から生命までの普遍的現象
 時間的課題:10億年をどのように視覚化するか?
 生命の誕生に不可欠な3つの要素
 なぜホモ属は90万年前に絶滅の危機に瀕したのか?
 影の生物圏
 人間中心主義の衰退:宇宙が私たちの重要性を相対化するとき
 カブトガニ:生きている化石!
 生命の起源:パンスペルミア理論
 生命の起源:ホワイトスモーカー理論
 なぜ37度セルシウスなのか?
 私たちは宇宙で孤独なのか?科学と推測の間で
 氷の中の生命の痕跡:先史時代のマムートの出現
 ドリアス期:メガファウナを絶滅させたミニ氷河期
 2つの大氷河期:凍った地球の海で生き残る
 動物の切断後の再生:器官の再生
 生命の果て:地底のメフィスト、深淵の虫
 宇宙で固体フラーレンが発見される
 人間の歩行:原人の二足歩行の起源
 カラボ:人間進化の窓
 エントロピー:時間とは何か?
 無生物から生命への移行
 複雑さの物語:素粒子から最初の生物まで
 メガポード:火山の熱を利用する
 アルディピテクス:440万年前のエチオピアの原人
 自然選択:カバマダラの例
 オルドビス紀:サンゴ、三葉虫、放散虫の時代
 液体の水:単なる溶媒以上、化学反応の促進剤
 ネアンデルタール人:人類の失われたいとこ
 ASIMO:最初のヒューマノイド
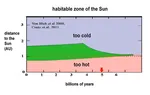 是什么条件允许了生命的出现?
 フェルミのパラドックスとプラトンの洞窟:私たちは孤独か、それとも盲目か?
 クマムシ:生物学の法則に挑戦する不死身の生物
 トゥーマイ:最古の原人の一つ
 生命の樹:数十億の絶滅種と単一の祖先コミュニティ
 深海の生命:極限の適応を遂げた生物
 シアノバクテリアと酸素危機:原始的な環境災害
 物質から生命へ:生物学的出現の曖昧な境界
 世界最小のカエル:微小脊椎動物の生理的秘密
 小氷期の説明
 生命の光:月が明かすバイオシグネチャー
 生きている光:生物発光の驚異的な秘密
 感覚を超えて:科学の大革命
 原始のスープ:地球生命の化学的揺籃
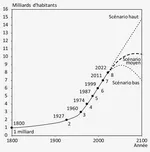 世界人口:10億人から人口飽和へ
 生態学と崩壊:イースター島の事例
 フラクタル:自己組織化された普遍的構造