


アルディピテクス:440万年前のエチオピアのヒト科動物
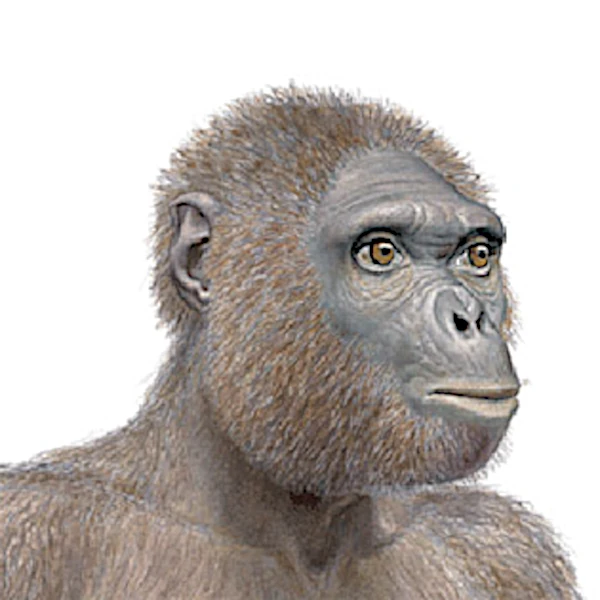
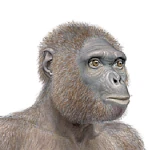
約440万年前に生息していた絶滅したヒト科動物アルディピテクス・ラミドゥスのメス「アルディ」の芸術的復元。
アルディピテクス・ラミドゥスは、既知の最古のヒト科動物の一つであり、エチオピアのアワッシュ渓谷で発見され、同種の少なくとも35個体の断片が出土している。
画像ソース:John Gurche (新しいウィンドウ) — パブリックドメイン。
科学的要約
Astronooの記事は、エチオピアのアファール地方で発見され、440万年前に遡る標本アルディピテクス・ラミドゥス(アルディ)を紹介しています。この主要な発見は、初期のヒト科動物の進化に関する概念を覆しました。その部分骨格の研究は、地上での既に確立された二足歩行と持続的な樹上適応を組み合わせたユニークな解剖学的モザイクを明らかにしています。発見者らによって開けたサバンナではなく樹木のある環境として提示されたその環境の分析は、二足歩行の原動力となった選択圧に関する仮説を根本的に変えましたが、この点は科学界内で依然として議論されています。アルディピテクスは、人類の系統とチンパンジーの系統の分岐に近い重要な位置を占めており、私たちの進化史の最初の章に光を当てています。
アルディピテクスの発見は、なぜ人類の起源に関する理解を変えたのか?
この記事は、エチオピアで発見された440万年前の化石ヒト科動物アルディピテクス・ラミドゥスに捧げられています。しかし、なぜこの発見は古人類学者にとってそれほど基本的なものなのでしょうか?その答えは、「アルディ」という愛称で呼ばれるこの標本が、私たちの系統の進化について教えてくれることにあります。発見以前は、人類の特徴である二足歩行はアフリカのサバンナの拡大に応じて出現したと考えられていました。発見者らによれば、「アルディ」は樹木のある環境に住んでおり、これはこの物語を覆すものです;しかし、他のチームはこの解釈に異議を唱え、より開けた樹木サバンナのモザイクを主張しています(下記参照)。その解剖学は、原始的特徴と派生特徴の魅力的な混合です。地面での二足歩行を示す広い骨盤と大後頭孔の位置を持ちながらも、樹上生活に適応した掴みやすい親指と四肢を持っています。この前例のない組み合わせは、二足歩行が必ずしも開けたサバンナへの適応として生じたのではなく、おそらくより樹木のある状況で、木々の間の移動や食料の収集を容易にするために生じたことを示唆しています。したがって、アルディピテクスは直接の祖先ではなく、私たちの系統とチンパンジーの系統の分岐に近い、代替的な進化の道筋の例外的な証人なのです。
こちらもおすすめ
宇宙の探検をさらに深めるためのテーマをご紹介します:
アルディ:古人類学における主要な発見
エチオピアのアファール地方で発見されたアルディピテクス・ラミドゥスは、20世紀の古人類学において最も重要な発見の一つです。最初の化石断片(歯と下顎骨)は1992年から1993年にかけてティム・ホワイト、ゲン・スワ、ベルハネ・アスファウ率いるチームによって発掘されましたが、「アルディ」という愛称で呼ばれる部分骨格が中アワッシュ渓谷のアラミス遺跡で発見されたのは1994年になってからでした。その完全な分析は、骨の脆く押しつぶされた状態が長期のデジタル修復作業を必要としたため、15年後の2009年まで発表されませんでした。440万年前に遡るこのヒト科動物は、ホワイトチームによれば、主に樹木のある環境に生息していましたが、この解釈は依然として議論されています(この論争に捧げられた章を参照)。
ユニークな解剖学的特徴
アルディピテクスは、原始的特徴と派生特徴の魅力的な混合を示しています。 化石は、約1.20メートル、50キログラムの生物(メスのアルディ個体の推定値)を示しています。 その脳は約\(300 \text{ から } 350 \text{ cm}^3\)の大きさで、現代のチンパンジーに匹敵していました。その歯列は、大型類人猿とは異なる縮小した犬歯を示しており、攻撃性の低い社会行動を示唆しています。広い骨盤と大後頭孔の位置は二足歩行への適応を示していますが、足は木登りのための対向可能な母趾(掴みやすい親指)を保持していました。
樹上と地上の間の生活様式
二足歩行の出現を開けたサバンナ環境に位置づけた以前の理論とは対照的に、ティム・ホワイトチームはアルディピテクスの環境を主に樹木のある環境と解釈しました。この解釈は、二足歩行を促進した進化的圧力の再考につながりました:それは、景観の開放への対応としてではなく、散在する木々の間の移動や混合環境での食料運搬を容易にするために生じた可能性があります。アルディピテクスは、樹上移動と地上移動を組み合わせた生活様式への顕著な適応を示していましたが、森林被覆の正確な範囲は研究者間で依然として議論されています。
アルディピテクス:初期のヒト亜科
人類の系統の中心にある分類
440万年前のアルディピテクス・ラミドゥスは、単に古代のヒト科動物であるだけでなく、ヒト亜科、すなわちオランウータンよりも人間に近い系統に属しています。
祖先的形質と派生的形質のユニークな混合
この分類は、アルディピテクスがチンパンジーや人間と共通の祖先を共有するが、私たちの系統に直接つながる分岐上に位置することを意味します。偶発的な二足歩行と樹上能力を混ぜたそのユニークな形質の組み合わせは、ヒト亜科の特徴的な形質、特に二足歩行の漸進的な進化を示しています。
ヒト・チンパンジー分岐の鍵となる証人
ヒト亜科として、アルディピテクスは私たちの系統とチンパンジーの系統の分岐の初期段階に関する重要な手がかりを提供し、それによって古代の大型類人猿とより新しいアウストラロピテクス属との間の移行を明らかにしています。ヒト族の中でのその位置は、人類の起源を理解するための不可欠な要となっていますが、一部の研究者(特にE.サルミエント)は、アルディピテクスの特定の形質のヒト亜科としての地位に異議を唱え、解剖学的全体像は私たちの系統のメンバーというよりも、基底的な大型類人猿と適合すると判断しています。
注記:
ヒト科は、人間を含むすべての現生および化石の大型類人猿を包含しますが、ヒト亜科はオランウータンを除外し、ゴリラ、チンパンジー、人間をまとめる亜科を指します。したがって、すべてのヒト亜科はヒト科ですが、すべてのヒト科がヒト亜科というわけではありません。
人類進化樹の中での位置
アルディピテクス・ラミドゥスは、有名なルーシーを含むアウストラロピテクス・アファレンシスよりも約100万年先行します。それは、\(5 \text{ から } 7 \text{ 百万年}\)と推定される人類の系統とチンパンジーの系統の分岐の近くに位置しています。この年代的位置は、その後のヒト科動物につながる適応の重要な証人となっています。最近の発見は、アルディピテクスはおそらくホモ・サピエンスの直接の祖先ではなく、代替的な進化の道を探求したいとこ分枝であったことを示唆しています。
論争の的となった環境:密林か、樹木サバンナか?
ホワイトチームの初期の解釈
開けたサバンナではなく樹木のある、あるいは森林の環境というティム・ホワイトチームの最もセンセーショナルな主張は、コンセンサスを得ませんでした。2010年、ホワイトとその同僚によって発表された同じ同位体および堆積学データを再検討した、ゲオケミストのサー・サーリング(ユタ大学)率いるチームは、別の解釈を提案しました:アラミスの環境は、古生態学者が樹木サバンナまたは低木サバンナと呼ぶものにより対応し、木本植生被覆は25%以下と推定され、厳密な意味での「森林パッチ」ではありません。
依然として開かれた科学的議論
ホワイトチームは、その解釈は地質学、古土壌同位体、化石植物相、無脊椎動物、小型哺乳類、鳥類相、大型哺乳類の生態形態学といった収束する証拠の束に基づいており、反論者によって強調された同位体化学のみに基づくものではないと反論しました。両陣営は、しかしながら一点で一致しています:完全に開けた草のサバンナという古典的仮説は、アルディピテクスにおける二足歩行の出現を説明するために放棄されなければならないということです。したがって、議論は木の存在よりもその正確な密度に関するものであり、今日まで科学的に開かれています:慎重さは、「森林環境」を最終的に確立された事実としてではなく、発見者たちの解釈として提示することを推奨しています。
犬歯の二形性と社会生活:祖先的一夫一妻制へ?
攻撃性の低さを示唆する縮小した犬歯
ホワイトチームの最も議論された主張の一つは、アルディピテクスの社会行動に関するものです。オスとメスでほとんど違いがなく、あまり発達していないその犬歯は、2009年から、C.オーウェン・ラブジョイによって提案された「夫婦間の食料供給」仮説に関連して、減少したオス内攻撃性の指標として解釈されました:比較的安定したペア絆が食料の共有を促進し、間接的に二足歩行を促進した(手は運搬のために自由になった)というものです。
現代人に匹敵する犬歯の二形性
2021年に全米科学アカデミー紀要に発表された、ゲン・スワとその同僚による研究は、利用可能なすべてのアルディピテクス・ラミドゥスの犬歯化石に基づいて、この観察を明確にしました:この種の犬歯のサイズ二形性は、現生大型類人猿の中で最も二形性が少なく攻撃的でないボノボよりも有意に低く、現代人に見られる変動性に近いというものです。この結果は、二足歩行の出現とほぼ同時期に、オス内攻撃性の早期減少があったという考えを強化します。
社会システムに関する矛盾するアプローチ
しかし、この解釈はコミュニティ全体に共有されているわけではありません:2011年の、第2指と第4指の比(出生前のアンドロゲン曝露の間接的マーカー)に基づく研究は、アウストラロピテクス・アファレンシスとは対照的に、アルディピテクスを一夫一妻制ではなく複婚制の傾向がある種に分類しました。歯列という一方のアプローチと、指の比率という他方のアプローチという、これら二つの独立したアプローチ間の不一致は、数十の化石から絶滅種の社会行動を再構築することがいかに繊細な作業であるかを示しており、アルディピテクスにおける祖先的一夫一妻制の仮説を、実証されたものではなく、もっともらしいものとして考慮することを促しています。
比較表
| 種 | 年代(百万年) | 頭蓋容量 | 平均身長 | 平均体重 | 移動様式 | 食性 | 環境 |
|---|---|---|---|---|---|---|---|
| アルディピテクス・ラミドゥス | 4.4 | 300–350 cm³ | ≈ 1.20 m | ≈ 50 kg | 時折の二足歩行 + 樹上生活 | 雑食(果実、種子、根、小型無脊椎動物) | 樹木のある環境(正確な性質は議論中:開けた森林か樹木サバンナ) |
| アウストラロピテクス・アナメンシス | 4.2–3.9 | ≈ 365–370 cm³ | ≈ 1.20–1.40 m | ≈ 45–55 kg | アルディピテクスよりも確立された二足歩行だが、依然として登攀可能 | 優占的な果食性、塊茎と種子を含む | 開けた樹木のある環境とサバンナ地帯 |
| アウストラロピテクス・アファレンシス(ルーシー) | 3.2 | 400–450 cm³ | ≈ 1.05–1.50 m | ≈ 30–45 kg | 確立された二足歩行、残存的な登攀 | 主に果食性、塊茎で補完 | 東アフリカの樹木サバンナ |
| ホモ・ハビリス | 2.4–1.6 | 600–700 cm³ | ≈ 1.25–1.40 m | ≈ 35–50 kg | 完全な二足歩行、石器 | 肉摂取量増加の雑食 | 東アフリカのサバンナと開けた景観 |
| ホモ・エレクトス | 1.9–0.1 | 850–1100 cm³ | ≈ 1.50–1.80 m | ≈ 50–70 kg | 現代的な二足歩行 | 日和見的な雑食、火の制御 | アフリカ、その後ユーラシア(様々な気候) |
| ホモ・サピエンス | 0.3 – 現在 | 1300–1600 cm³ | ≈ 1.60–1.85 m | ≈ 55–90 kg | 現代的な二足歩行 | 雑食、農業、牧畜、象徴的文化 | 全ての地理的地域、高い適応能力 |
- 出典:White T. et al. (2009), Science ; Smithsonian Human Origins ; Tattersall I. (2012), Masters of the Planet, Palgrave Macmillan ; Antón S.C. (2003), Natural History of Homo erectus.
参考文献
- White, T. D., Asfaw, B., Beyene, Y., Haile-Selassie, Y., Lovejoy, C. O., Suwa, G. & WoldeGabriel, G. (2009). Ardipithecus ramidus and the Paleobiology of Early Hominids. Science, 326(5949), 75-86. DOI: 10.1126/science.1175802. (新しいウィンドウ)
- Lovejoy, C. O., Suwa, G., Spurlock, L., Asfaw, B. & White, T. D. (2009). The Pelvis and Femur of Ardipithecus ramidus: The Emergence of Upright Walking. Science, 326(5949), 71, 71e1-71e6. DOI: 10.1126/science.1175831. (新しいウィンドウ)
- Suwa, G., Asfaw, B., Kono, R. T., Kubo, D., Lovejoy, C. O. & White, T. D. (2009). The Ardipithecus ramidus Skull and Its Implications for Hominid Origins. Science, 326(5949), 68, 68e1-68e7. DOI: 10.1126/science.1175825. (新しいウィンドウ)
- Cerling, T. E., Levin, N. E., Quade, J., Wynn, J. G., Fox, D. L., Kingston, J. D., Klein, R. G. & Brown, F. H. (2010). Comment on the Paleoenvironment of Ardipithecus ramidus. Science, 328(5982), 1105d. DOI: 10.1126/science.1185274. (新しいウィンドウ)
- Suwa, G., Sasaki, T., Semaw, S. et al. (2021). Canine Sexual Dimorphism in Ardipithecus ramidus Was Nearly Human-like. PNAS, 118(49), e2116630118. DOI: 10.1073/pnas.2116630118. (新しいウィンドウ)
- Nelson, E., Rolian, C., Cashmore, L. & Shultz, S. (2011). Digit Ratios Predict Polygyny in Early Apes, Ardipithecus, Neanderthals and Early Modern Humans but not in Australopithecus. Proceedings of the Royal Society B, 278(1711), 1556-1563. DOI: 10.1098/rspb.2010.1740. (新しいウィンドウ)
- Smithsonian National Museum of Natural History - Ardipithecus ramidus (新しいウィンドウ)
FAQ:アルディピテクス・ラミドゥスに関するすべて
アルディピテクス・ラミドゥスとは何ですか?どこで発見されましたか?
アルディピテクス・ラミドゥスは、440万年前に遡る絶滅したヒト科動物の種です。その化石はエチオピアのアファール地方、アラミス遺跡で発見されました。「アルディ」という愛称で呼ばれる最も完全な標本は、1994年以降、古人類学者ティム・ホワイト率いる国際チームによって発掘されました。この発見は、人類の系統とチンパンジーの系統の分岐に近いヒト科動物の珍しい姿を提供するため、重要です。
アルディピテクスの発見は、人類の進化を理解する上でなぜ重要ですか?
アルディピテクス以前は、二足歩行はアフリカのサバンナの拡大に反応して出現したと考えられていました。発見者らはアルディピテクスを主に樹木のある環境に位置づけており、これはこの仮説を覆すものです — しかし、この解釈は樹木サバンナを支持する他のチームによって論争されています。どの解釈を採用するにせよ、地上での二足歩行と樹上適応を混ぜたアルディピテクスの解剖学は、二足歩行がおそらく完全に開けたサバンナでは出現しなかったことを示しています。さらに、人類/チンパンジー分岐に近いその年代的位置は、私たちの系統の進化のごく初期の段階の鍵となる証人となっています。
アルディピテクス・ラミドゥスの主な解剖学的特徴は何ですか?
アルディピテクスは魅力的な形質のモザイクを示しています。そのサイズは控えめで(アルディ個体で約1.20m、50kg)、脳は小さく(300-350 cm³)、チンパンジーに匹敵します。縮小した犬歯と性間の差異が少ないその歯列は、すでに人間のそれにより近いものです。その骨盤は広く、後頭孔の位置は二足歩行を示唆しますが、足は樹上生活に典型的な掴みやすい親指(対向可能な母趾)を保持しており、二足歩行と登攀の両方への適応を示しています。
アルディピテクスは人類の系統樹にどのように位置づけられますか?
アルディピテクスは、大多数の研究者によってヒト亜科と見なされています。つまり、オランウータンを除外し、ゴリラ、チンパンジー、人間を含む亜科の一部です(少数の研究者はこの地位に異議を唱えています)。それはアウストラロピテクス(ルーシーなど)よりも古く、500万から700万年前の人類とチンパンジーの系統の分岐近くに位置します。それはおそらく、ホモ・サピエンスの直接の祖先というよりも、私たちの直接の祖先のいとこ分枝です。
アルディピテクスの環境と生活様式はどのようなものでしたか?
ティム・ホワイトチームによれば、アラミス遺跡の分析は、アルディピテクスが樹木のある環境、すなわち開けた森林と樹木のある地域から構成され、人類の揺り籠と考えられていた開けたサバンナとは大きく異なる環境に住んでいたことを示しています。しかし、サー・サーリング率いる競合チームは、同じデータを樹木被覆が減少した樹木サバンナの証拠として再解釈しました:植生被覆の正確な密度に関する議論は依然として開かれています。この地上と樹上の両方の混合した生活様式は、いずれにせよ、果実、種子、根、小型無脊椎動物からなる日和見的な雑食性の食事を示唆しており、生息地の様々な資源に適応することを可能にしていました。
アルディピテクスに関するさらなる科学的情報はどこで見つけられますか?
主要な科学出版物は、Science(特に2009年のWhiteらの論文)や全米科学アカデミー紀要(Suwaら、2021年)などのジャーナルで入手可能です。オンラインの参考リソースには、スミソニアン人類起源プログラム (新しいウィンドウ)のウェブサイトや、学術論文を検索するためのSAO/NASA Astrophysics Data System (ADS) (新しいウィンドウ)などのデータベースが含まれます。
 第零法則から生成AIへ:問われるアシモフの法則
 複雑な社会はどのように誕生し、消滅するのか?
 AIに直面する脳:データ洪水に圧倒される器官のクロニクル
 AIは考えることを学んだ:人工意識は存在することを学ぶのか?
 未来への執着:予測が生命を形作るとき
 次期氷河期にどの地域が居住可能か?
 21世紀のダーウィンの雷鳴:加速する進化
 致命的不均衡:極小の物質の予想外の力
 進化の大フィルター:フェルミのパラドックスの鍵
 なぜヒマワリは太陽の方を向くのか?ラグランジアンによる解答
 世界人口2026:大陸別の人口動向
 なぜ生命は不均衡から生まれ、熱力学的平衡で消滅するのか
 電磁スペクトルと視覚:私たちの目が捉える地球の姿
 自己と非自己:物理法則から見たアイデンティティの簡単な解説
 分子時計:突然変異の偶然性から時間の測定へ
 最小細胞:避けられない出現
 ホワイトサンズの足跡:アメリカ大陸の最初の一歩
 ホミニン:出現、拡散、絶滅
 出生率の低下:人口災害か自然な進化か?
 自然選択 vs 偶然:なぜ進化は宝くじではないのか?
 生命が地球から始まったら?パンスペルミア理論の革命
 世界を激変させる大分岐:生存か崩壊か?
 原始化学:最初の有機分子はどこで生まれたのか?
 COとCO₂:2つのガス、2つのリスク、2つの生物学的メカニズム
 自発的同期:物理学から生命までの普遍的現象
 時間的課題:10億年をどのように視覚化するか?
 生命の誕生に不可欠な3つの要素
 なぜホモ属は90万年前に絶滅の危機に瀕したのか?
 影の生物圏
 人間中心主義の衰退:宇宙が私たちの重要性を相対化するとき
 カブトガニ:生きている化石!
 生命の起源:パンスペルミア理論
 生命の起源:ホワイトスモーカー理論
 なぜ37度セルシウスなのか?
 私たちは宇宙で孤独なのか?科学と推測の間で
 氷の中の生命の痕跡:先史時代のマムートの出現
 ドリアス期:メガファウナを絶滅させたミニ氷河期
 2つの大氷河期:凍った地球の海で生き残る
 動物の切断後の再生:器官の再生
 生命の果て:地底のメフィスト、深淵の虫
 宇宙で固体フラーレンが発見される
 人間の歩行:原人の二足歩行の起源
 カラボ:人間進化の窓
 エントロピー:時間とは何か?
 無生物から生命への移行
 複雑さの物語:素粒子から最初の生物まで
 メガポード:火山の熱を利用する
 アルディピテクス:440万年前のエチオピアの原人
 自然選択:カバマダラの例
 オルドビス紀:サンゴ、三葉虫、放散虫の時代
 液体の水:単なる溶媒以上、化学反応の促進剤
 ネアンデルタール人:人類の失われたいとこ
 ASIMO:最初のヒューマノイド
 是什么条件允许了生命的出现?
 フェルミのパラドックスとプラトンの洞窟:私たちは孤独か、それとも盲目か?
 クマムシ:生物学の法則に挑戦する不死身の生物
 トゥーマイ:最古の原人の一つ
 生命の樹:数十億の絶滅種と単一の祖先コミュニティ
 深海の生命:極限の適応を遂げた生物
 シアノバクテリアと酸素危機:原始的な環境災害
 物質から生命へ:生物学的出現の曖昧な境界
 世界最小のカエル:微小脊椎動物の生理的秘密
 小氷期の説明
 生命の光:月が明かすバイオシグネチャー
 生きている光:生物発光の驚異的な秘密
 感覚を超えて:科学の大革命
 原始のスープ:地球生命の化学的揺籃
 世界人口:10億人から人口飽和へ
 生態学と崩壊:イースター島の事例
 フラクタル:自己組織化された普遍的構造