


Déséquilibre Fatal: La Puissance Insoupçonnée de l'Infiniment Petit
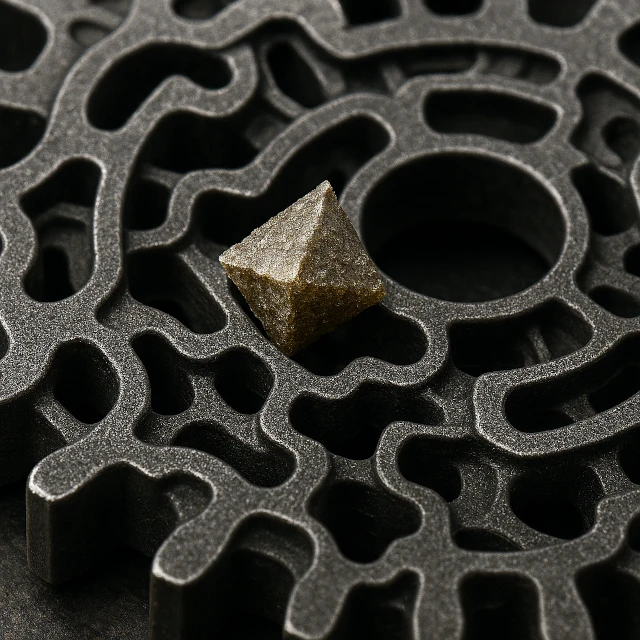
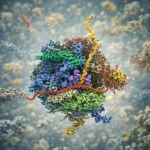
Illustration montrant qu'une seule molécule toxique (un grain de sable aux arêtes vives) se logeant dans le site actif d'une grande protéine enzymatique (un engrenage complexe), peut stopper le fonctionnement et paralyser un organisme entier.
Source image : astronoo.com (nouvelle fenêtre) — image générée par IA, domaine public.
Résumé scientifique
Cet article explique comment une quantité infinitésimale de matière peut paralyser un organisme géant. La réponse réside dans le piratage d'un mécanisme biologique fondamental : la reconnaissance moléculaire spécifique (modèle « clé-serrure » d'Emil Fischer). Une molécule infime (toxine, poison) peut imiter parfaitement une « clé » naturelle et s'insérer dans une « serrure » biologique (récepteur, enzyme, canal ionique) avec une affinité redoutable, bloquant ou activant en permanence une fonction essentielle. Cet effet domino illustre que l'échelle de la cause n'a souvent aucun rapport avec l'ampleur de la conséquence.
Comment l'infiniment petit peut-il terrasser un organisme géant ?
La réponse réside dans le piratage d'un mécanisme biologique fondamental : la reconnaissance moléculaire spécifique (modèle « clé-serrure » d'Emil Fischer). Une molécule infime, toxine ou poison, peut imiter parfaitement la forme et la distribution électronique d'une « clé » naturelle. En s'insérant dans une « serrure » biologique (récepteur, enzyme, canal ionique) avec une affinité redoutable, elle bloque ou active en permanence une fonction essentielle, déclenchant un effet domino. Ainsi, la toxine botulique (1 ng/kg), le cyanure (quelques mg/kg) ou la tétrodotoxine (2 mg) paralysent des fonctions vitales, illustrant que l'échelle de la cause n'a souvent aucun rapport avec l'ampleur de la conséquence.
À découvrir aussi
Poursuivez votre exploration de l'Univers avec ces sujets :
La fragilité cachée des systèmes biologiques complexes
Un organisme vivant est un système physico-chimique complexe et organisé, maintenu dans un état stationnaire hors d'équilibre thermodynamique. Cette organisation dynamique est stabilisée par des échanges constants d'énergie libre (potentiel thermodynamique mesurant l'énergie disponible pour effectuer un travail à température et pression constantes). Sa stabilité apparente repose sur un réseau dense de rétroactions, d'échanges énergétiques et de flux de matière. Dans ce contexte, l'introduction d'un fragment chimique infime peut agir comme un véritable déclencheur de catastrophe. Lorsque des milliers de réactions sont couplées, une perturbation locale peut se propager, s'amplifier par effet domino et conduire à une rupture globale de l'équilibre vital.
N.B. :
L'expression hors équilibre thermodynamique ne désigne pas un état instable ou chaotique.
Elle décrit le régime stationnaire propre aux systèmes ouverts biologiques, dans lequel les propriétés macroscopiques restent stables malgré une production continue d'entropie.
Cet état est maintenu par des flux permanents d'énergie libre et de matière ; sans ces apports, le système évoluerait spontanément vers l'équilibre thermodynamique, où toute organisation fonctionnelle disparaît.
L'infiniment petit contre l'immensément grand: Le paradoxe de l'échelle
La vie, dans ses formes les plus avancées, est un édifice d'une complexité vertigineuse. Un être humain est constitué d'environ \( 30 \times 10^{12} \) cellules, chacune abritant des milliards de molécules organisées avec une précision nanométrique. Pourtant, cette formidable machine peut être mise à genoux, paralysée ou déséquilibrée par l'interaction avec une quantité infinitésimale de matière. Comment un "grain de sable chimique", une simple molécule ou même un atome isolé, peut-il terrasser un organisme géant? Cette question, à première vue biologique, trouve sa réponse ultime dans les lois de la physique atomique et de la mécanique quantique: c'est la complémentarité des nuages électroniques et l'énergie des orbitales moléculaires qui déterminent si un fragment chimique va s'arrimer à une cible biologique, déséquilibrant par cascade des fonctions essentielles.
N.B. :
Dans un système biologique, la notion de seuil critique est centrale.
En dessous d’une concentration donnée, une molécule est inoffensive.
Au-delà, la dynamique globale bascule, sans proportion directe avec la quantité ajoutée.
Le Principe de la Clé et de la Serrure: Un Système de Communication Piraté
Ce pouvoir de l'infime s'explique par le détournement d'un mécanisme biologique fondamental: la reconnaissance moléculaire spécifique, conceptualisée par le modèle « clé-serrure » de Emil Fischer (1852-1919). Ce principe est le pilier de la communication cellulaire. Les protéines de l'organisme (récepteurs, enzymes, canaux ioniques) possèdent des sites de liaison aux formes électroniques uniques, de véritables « serrures moléculaires ». Seules les molécules-signaux endogènes, les « clés » parfaitement adaptées, peuvent s'y lier pour déclencher une réponse précise: ouvrir un canal, activer une enzyme, moduler un gène. C'est un système de filtrage hyper-efficace qui permet à la cellule d'échanger des informations et des flux de manière sécurisée et coordonnée.
Le drame survient lorsqu'un « grain de sable chimique » (une toxine, un poison, un médicament) mime parfaitement la forme et la distribution électronique d'une clé naturelle. Cette « fausse clé » s'insère alors dans la serrure avec une affinité redoutable, verrouillant le mécanisme dans un état « on » ou « off » permanent. Bien que reposant sur des interactions physiques faibles (liaisons hydrogène, forces de Van der Waals…), cette liaison pirate est d'une spécificité telle qu'elle peut paralyser irrémédiablement une fonction biologique essentielle. L'arme la plus puissante contre un géant est donc de forger la clé qui ouvre (ou ferme à jamais) la porte de sa salle des machines.
N.B. sur le mécanisme fondamental:
La biologie moderne affine le modèle de Fischer en parlant de complémentarité stéréo-électronique.
La « forme » pertinente est celle des nuages électroniques. C'est cette adéquation quantique précise, fruit de milliards d'années d'évolution, qui rend le système à la fois incroyablement fiable pour la cellule et tragiquement vulnérable au piratage chimique.
La toxicité ou l'effet thérapeutique naissent de cette usurpation d'identité moléculaire.
Exemples Emblématiques du Pouvoir de l'Infiniment petit
Les exemples concrets illustrent parfaitement le concept des structures dissipatives (systèmes ouverts maintenus hors d'équilibre par des flux d'énergie, capables de s'auto-organiser) théorisé par Ilya Prigogine (1917-2003). L'organisme, en tant que structure dissipative, n'est stable que dans une fenêtre étroite de conditions. Chaque exemple ci-dessous montre comment un « grain de sable chimique » agit comme un « forçage » infinitésimal mais précis, repoussant une fonction vitale hors de son domaine de stabilité et provoquant une transition de phase fonctionnelle, souvent catastrophique.
| Agent / Molécule | Taille / Quantité Infime | Cible dans l'Organisme | Conséquence Majeure & Mécanisme |
|---|---|---|---|
| Toxine botulique (type A) | ~ 1 nanogramme par kg (dose létale estimée) | Protéines SNARE dans les terminaisons nerveuses motrices | Paralysie flasque. Bloque la libération du neurotransmetteur acétylcholine. |
| Ion cyanure (CN⁻) | Quelques milligrammes par kg | Cytochrome c oxydase (Complexe IV de la chaîne respiratoire mitochondriale) | Asphyxie cellulaire. Bloque le transfert terminal d'électrons, arrêtant la production d'ATP. |
| Tétrodotoxine (TTX) (Poisson-globe) | ~ 2 mg (dose létale totale) | Canaux sodiques voltage-dépendants des neurones | Paralysie neurologique. Se bloque physiquement dans le canal, empêchant la génération du potentiel d'action. |
| Digitoxine (Digitaline) | Dose thérapeutique étroite (~ 0.1 mg/jour) | Pompe Na⁺/K⁺ ATPase des cellules cardiaques | Modulation de la force cardiaque. Inhibe la pompe, augmentant le calcium intracellulaire et la contractilité. |
| Ricine | Quelques microgrammes par kg | Sous-unité 28S de l'ARN ribosomal (dans le cytosol) | Arrêt de la synthèse protéique. Dépurine un résidu d'ARN ribosomal, inactivant le ribosome. |
| Monooxyde de carbone (CO) | 0.1% dans l'air (exposition prolongée) | Hème de l'hémoglobine (site de fixation de l'O₂) | Hypoxie sévère. Se lie à l'hème avec une affinité 200x supérieure à l'oxygène, formant la carboxyhémoglobine. |
| Imatinib (médicament) | Dose thérapeutique de ~ 400 mg/jour | Site ATP de la tyrosine kinase BCR-ABL (mutée) | Rémission de la leucémie myéloïde chronique. Inhibe compétitivement l'activation de l'enzyme oncogène. |
| Amanitine (Amanite phalloïde) | ~ 0.1 mg/kg (dose létale) | ARN polymérase II (enzyme de transcription) | Défaillance hépatique. Bloque la transcription des gènes, menant à la mort cellulaire programmée (apoptose). |
| Malformation congénitale (ex: Thalidomide) | Dose unique pendant la grossesse | Protéine Cereblon (régulant le développement des membres) | Phocomélie. Détourne le complexe protéique, entraînant une dégradation aberrante de facteurs de croissance. |
| Mutation ponctuelle (ex: drépanocytose) | Substitution d'1 nucléotide sur ~3 milliards | Gène HBB (codant la bêta-globine) | Drépanocytose. Changement Glutamate → Valine, altérant la structure de l'hémoglobine et des globules rouges. |
- Sources: Journal of Pharmacology and Experimental Therapeutics, National Library of Medicine (NIH), European Medicines Agency (EMA), Toxicologie Clinique.
Ce qu'il faut retenir: La Fragilité de la Complexité
Le vivant est une machine d'une robustesse et d'une résilience extraordinaires, fruit de milliards d'années d'évolution. Pourtant, sa complexité même le rend vulnérable à de petites perturbations ciblées. Comprendre ce principe, c'est saisir à la fois la source de terribles poisons et le fondement d'une médecine de précision. Le "grain de sable dans la machine vivante" nous rappelle que dans le monde du vivant, l'échelle de la cause n'a souvent aucun rapport avec l'ampleur de la conséquence.
FAQ : Tout savoir sur le pouvoir de l'infiniment petit dans le vivant
Qu'est-ce que le modèle de la « clé et de la serrure » en biologie ?
Proposé par Emil Fischer (1852-1919), ce modèle décrit la reconnaissance moléculaire spécifique. Les protéines de l'organisme (récepteurs, enzymes) possèdent des sites de liaison (serrures) aux formes électroniques uniques. Seules les molécules-signaux endogènes (clés naturelles) peuvent s'y lier pour déclencher une réponse précise. Une toxine ou un médicament peut agir comme une « fausse clé » en mimant parfaitement la clé naturelle, verrouillant alors le mécanisme dans un état « on » ou « off » permanent.
Pourquoi une quantité infinitésimale de poison peut-elle être mortelle ?
La raison principale est la haute affinité et spécificité des molécules toxiques pour leurs cibles biologiques. Par exemple, le cyanure (CN⁻) se lie au complexe IV de la chaîne respiratoire mitochondriale avec une très forte affinité, bloquant la production d'ATP (énergie cellulaire). La toxine botulique (1 ng/kg) cible les protéines SNARE des terminaisons nerveuses, empêchant la libération de neurotransmetteurs. Même une concentration infime peut saturer les cibles essentielles et déclencher une cascade de défaillances.
Qu'est-ce qu'un « seuil critique » dans un système biologique ?
Un seuil critique est la concentration à partir de laquelle une molécule (toxique, médicament) devient dangereuse ou efficace. En dessous de ce seuil, l'organisme peut détoxifier, éliminer ou compenser la perturbation sans conséquence majeure. Au-delà, les mécanismes de régulation sont submergés, et la dynamique globale bascule brusquement. C'est la notion de « tout ou rien » : une infime quantité supplémentaire peut transformer un état stable en catastrophe, sans proportionnalité directe avec la dose ajoutée.
 De la Loi Zéro aux IA génératives : les lois d'Asimov en question
 Comment naissent et disparaissent les sociétés complexes ?
 Le cerveau face aux IA : chronique d'un organe débordé par le déluge des données
 L’IA a appris à penser : la conscience artificielle apprendra-t-elle à être ?
 L'Obsession du Futur : Quand la prédiction façonne le vivant
 Quelles régions du monde resteront habitables lors de la prochaine ère glaciaire ?
 Évolution rapide: le coup de tonnerre darwinien du 21e siècle
 Déséquilibre Fatal: La Puissance Insoupçonnée de l'Infiniment Petit
 Le Grand Filtre de l'Évolution: la clé du paradoxe de Fermi
 La Dernière Secousse Glaciaire : le Dryas Récent et ses conséquences sur les sociétés préhistoriques
 Pourquoi le tournesol se tourne-t-il vers le soleil? Une réponse par le Lagrangien
 Population mondiale 2026: tendances démographiques par continent
 Pourquoi la vie émerge du déséquilibre et disparaît à l'équilibre thermodynamique
 Le Spectre Électromagnétique et la Vision: Ce que nos yeux perçoivent de notre planète
 Le
Soi et le Non-Soi: Une Lecture Physique Simplifiée de l'Identité
 L’Horloge Moléculaire: Du hasard des mutations à la mesure du temps
 La
Cellule Minimale: L'Émergence Inévitable
 Les Empreintes de White Sands: Premiers Pas d’Amérique
 Homininés:
Apparition, Expansion et Extinctions
 Naissances en Berne: Catastrophe Démographique ou Évolution Naturelle?
 Sélection naturelle vs. Hasard: Pourquoi l’évolution n’est pas une loterie?
 Et si la Vie Partait de la Terre? Une Révolution dans la Théorie de la Panspermie
 La Grande Bifurcation qui va Bouleverser Notre Monde: Survie ou Effondrement?
 Chimie primordiale: Où naissent les premières molécules organiques?
 CO et CO₂:
Deux Gaz, Deux Risques, Deux Mécanismes Biologiques
 Synchronisation Spontanée: un Phénomène Universel, de la Physique au Vivant
 Défi temporel: comment illustrer un milliard d'années?
 Les trois composants indispensables à l'émergence de la vie
 Pourquoi le Genre Homo a frôlé l'extinction il y a 900 000 ans?
 La première étape vers l'émergence de la vie
 La biosphère de l'ombre
 Déclin de l'anthropocentrisme : quand le cosmos relativise notre importance
 La limule,
un fossile vivant!
 Origine de
la vie: Théorie de la panspermie
 Origine de la vie: Théorie des fumeurs blancs
 Pourquoi 37 degrés Celsius?
 Sommes-nous seuls dans le cosmos? Entre science et spéculation
 Traces
de Vie dans la Glace: L’Émergence des Mammouths Préhistoriques
 Le Dryas: Le mini-âge glaciaire qui faucha la mégafaune
 Les Deux Grandes Glaciations: Survivre dans les Océans d’une Terre Gelée
 Régénération chez les Animaux suite à Amputation: La Repousse Organique
 Aux Confins
de la Vie: Mephisto, Ver des Profondeurs Infernales
 Découverte
de buckyballs solides dans l'espace
 La Marche
Humaine: Aux Origines de la Bipédie chez les Hominidés
 Karabo : Une fenêtre sur l'évolution humaine
 Entropie: Qu'est-ce
que le temps?
 Le
passage entre l'inerte et le vivant
 Le
grand récit de la complexité: des particules élémentaires aux premiers organismes
 Le mégapode
utilise la chaleur volcanique
 Ardipithecus:
L'hominidé éthiopien de 4,4 millions d’années
 Sélection Naturelle: La Phalène du Bouleau
 L'Ordovicien:
L'ère des coraux, des trilobites et des graptolites
 L’Eau
liquide, Bien Plus Qu’un Solvant: Un Accélérateur de Réactions Chimiques
 Néandertal:
Le Cousin Disparu de l’Humanité
 Asimo : le premier
humanoïde
 Quelles sont les conditions qui ont permis l’émergence de la vie ?
 Paradoxe de Fermi et caverne de Platon: Sommes-nous seuls ou aveugles?
 Les tardigrades:
Ces créatures indestructibles qui défient les lois de la biologie
 Toumaï: l'un
des plus anciens homininés connus
 L'Arbre
du Vivant: Des milliards d'espèces disparues et une seule communauté ancestrale
 La
Vie dans les Abysses: L'Extême Adaptation des Créatures
 Cyanobactéries
et Crise de l’Oxygène: Une Catastrophe Écologique Primordiale
 De
la Matière à la Vie: La Frontière Floue de l’Émergence Biologique
 La Plus Petite Grenouille du Monde: Secrets Physiologiques d’un Microvertébré
 L'explication du Petit âge glaciaire
 La Lumière de la Vie: une Biosignature révélée par la Lune
 Lumière
Vivante: Les Secrets Éblouissants de la Bioluminescence
 Au delà de nos sens, les grandes révolutions scientifiques
 La
Soupe Primitive: Berceau Chimique de la Vie Terrestre
 Écologie
et effondrement: le cas de l’Île de Pâques
 Les Fractales:
Des structures universelles auto-organisées