


分子钟:从随机突变到时间测量
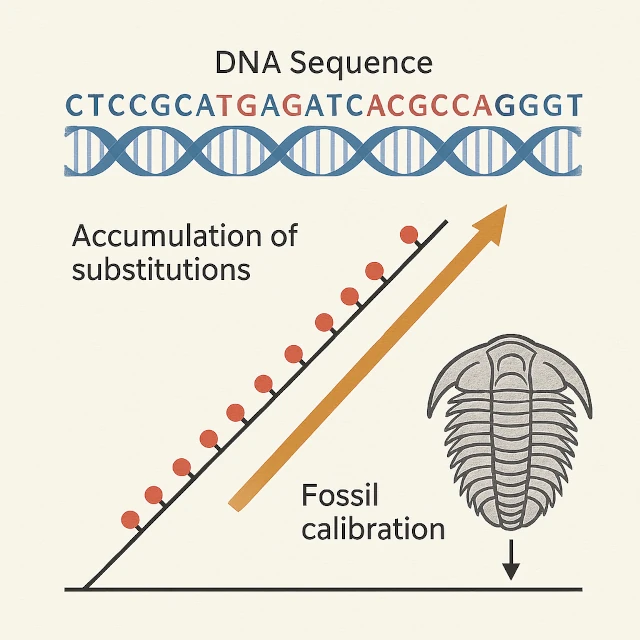
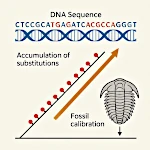
概念图展示DNA序列、替代积累及化石校准。图片来源:astronoo.com
什么是分子钟,它如何用于测定进化事件的时间?
分子钟是进化生物学中的一个概念,通过测量基因组中积累的遗传差异来估计两个谱系自分歧以来的时间。其原理基于中性置换以相对恒定的速率积累。关系式为 T = D / (2μ)。该方法已用于测定人-黑猩猩分歧、智人走出非洲、狗的驯化以及SARS-CoV-2的出现等关键事件。
分子钟原理
分子钟是进化生物学中的一个革命性概念,它通过利用基因组中突变积累的速率来推算物种形成事件的时间。
“分子钟”这一术语指的是通过测量两个谱系在生物分子序列中积累的差异量,来估算它们分化以来所经过的时间的能力。其原理基于一个观点:中性替代以平均速率积累,这一速率可用作计时器。
注:中性替换是指DNA或蛋白质序列中发生的改变,对生物体的生存或繁殖没有影响。这些替换既不受自然选择的青睐,也不会被自然选择淘汰,因此会随时间随机积累。
在最简单的形式下,散度与时间的关系由 \(T = \dfrac{D}{2\mu}\) 给出。
分子钟的参数
| 符号 | 名称 | 单位 | 物理意义 |
|---|---|---|---|
| \(T\) | 分歧时间 | 百万年(或Ma) | 两个谱系从共同祖先分化以来所经过的时间;这是分子钟能够估算的时间度量。 |
| \(D\) | 遗传距离 | 替代/站点 | 两个同源序列自分离以来累积差异的平均比例;反映了每个谱系中独立进化所中和的替代数量。 |
| \(\mu\) | 突变率 | 替换/站点/年份 | 特定碱基在单位时间内被另一种碱基替换的频率;这是分子钟的速度。 |
注:在进化生物学中,谱系指通过繁殖相互延续、随时间形成连续链条的一组生物体。在分子钟背景下,每个谱系独立积累替代突变,两个谱系间的遗传距离 \(D\) 等于它们自最近共同祖先以来各自发生的变化之和。
应用与关键年代测定
分子钟彻底改变了我们对进化的理解,使我们能够精确测定生命史上的关键事件——从主要分类群之间的分化到近期的进化事件。
它显著解决了关于进化时间表的长期争论,并为新物种出现、人类迁徙、大流行病起源以及物种驯化等多种现象提供了时间框架。
基因分析揭示的进化关键年代
| 分歧事件 | 预计时间 | 使用的遗传物质 | 可靠性 |
|---|---|---|---|
| 真核生物 - 原核生物 | 20-30亿年 | 核糖体基因 | 适度 |
| 光合作用的起源 | 25-32亿年 | 光合作用基因 | 适度 |
| 哺乳动物 - 鸟类 | 3.1亿年 | 保守基因 | 媒介 |
| 开花植物的起源 | 3亿年 | 叶绿体基因 | 媒介 |
| 恐龙(快速多样化)的辐射演化 | 2.3亿至2.5亿年 | 骨骼基因 | 适度 |
| 分歧鸟类——鳄形目 | 2.4亿至2.75亿年 | 核基因 | 媒介 |
| 胎盘哺乳动物的辐射(快速多样化) | 6600万至1亿年 | 线粒体DNA和核DNA | 媒介 |
| 鲸类——河马 | 5000万至6000万年 | 核基因 | 高 |
| 人类 - 黑猩猩 | 600万到800万年 | 核基因组与线粒体基因组 | 高 |
| 老鼠——大鼠 | 1200万至2400万年 | 完整基因组 | 高 |
| 尼安德特人与现代人类的分化 | 55万至76.5万年 | 古代核基因组 | 高 |
| 狗的驯化 | 15,000-40,000年 | 线粒体DNA | 媒介 |
| 美洲殖民化 | 15,000-20,000年 | 完整人类基因组 | 高 |
| 智人走出非洲的迁徙 | 6万至10万年 | 线粒体DNA和Y染色体 | 高 |
| 水稻的驯化 | 8,000-13,000年 | 叶绿体基因组 | 高 |
| HIV-1的出现 | 20世纪初期 | 完整病毒基因组 | 高 |
| SARS-CoV-2的出现 | 2019 | 完整病毒基因组 | 高 |
- 额外来源和工具:PubMed / NCBI、BEAST(贝叶斯时钟)、科学文献。
局限性与挑战
尽管分子钟功能强大,但它有几个重要的局限性:
- 校准:取决于化石数据的质量
- 可变速率:不同谱系之间的突变率并不恒定
- 饱和:在长期过程中,相同位点可能发生多次突变
- 自然选择:可能偏向中性突变的积累
- 来源:《自然》——分子钟与进化关系;《科学》——进化中的分子钟。
常见问题:关于分子钟的一切
什么是“中性置换”,为什么它是分子钟的核心?
中性置换是对生物体生存或繁殖没有影响的DNA或蛋白质序列中的点突变。这些突变既不被自然选择青睐也不被淘汰;它们随时间随机且规律地积累。正是这种统计规律性使得中性置换可以被用作分子的“秒表”。
科学家如何“校准”分子钟?
分子钟的校准依赖于独立的时间参考点,主要由化石提供。例如,如果一个已知最古老的化石约有6600万年的历史,这个年龄就被用作校准点来计算突变率 μ。通过将两个物种之间测量的遗传距离 D 除以 2×T(T 为已知的分歧时间)来获得 μ。这个校准后的速率随后被应用于其他群体。现代方法使用贝叶斯模型,整合多个化石并考虑速率变化。
分子钟的主要局限性是什么?
分子钟有几个重要的局限性:1) 依赖校准;2) 谱系间突变率可变;3) 在极长时间尺度上的饱和;4) 可能使突变积累产生偏差的自然选择。现代方法试图纠正这些偏差。
 从第零定律到生成式AI:阿西莫夫的法则受到拷问
 复杂社会如何诞生与消亡?
 面对人工智能的大脑:一个被数据洪流淹没的器官的编年史
 AI学会了思考:人工意识会学会存在吗?
 未来的执念:当预测塑造生命
 下一个冰河时期,世界上哪些地区仍适合居住?
 快速进化:21世纪达尔文式的惊人发现
 致命失衡:无限小的潜藏力量
 演化的伟大过滤器:费米悖论的关键
 最后一次冰川冲击:新仙女木期及其对史前社会的影响
 向日葵为何朝向太阳?拉格朗日量给出的答案
 2026年世界人口:各大洲人口趋势
 生命为何源于失衡,又死于热力学平衡
 电磁波谱与视觉:我们的眼睛如何感知地球
 自我与非我:身份认同的一种简化物理解读
 分子钟:从随机突变到时间测量
 最小细胞:不可避免的涌现
 白沙脚印:美洲最早的人类足迹
 古人类:出现、扩张与灭绝
 生育率下降:人口灾难还是自然演化?
 自然选择 vs 偶然性:为什么进化不是抽奖?
 如果生命起源于地球呢?泛种论理论的一场革命
 将颠覆世界的重大分岔:生存还是崩溃?
 原始化学:最初的有机分子源自何处?
 一氧化碳与二氧化碳:两种气体,两种风险,两种生物机制
 自发同步:从物理到生命的普遍现象
 时间挑战:如何形象化十亿年?
 生命涌现的三个基本要素
 为什么90万年前人属差点灭绝?
 生命涌现的第一步
 影子生物圈
 人类中心主义的衰落:当宇宙使我们的重要性相对化
 鲎,一种活化石!
 地球上生命的起源:泛种论
 地球上生命的起源:白烟囱理论
 为什么是37摄氏度?
 我们在宇宙中孤独吗?科学与推测之间
 冰层中的生命痕迹:史前猛犸象的出现
 新仙女木期:消灭巨型动物的小冰期
 两大冰期:在冰冻地球的海洋中生存
 动物截肢后的再生:组织的再生长
 生命的极限:墨菲斯托,地狱深渊之虫
 太空中发现固体巴基球
 人类行走:人科动物双足行走的起源
 卡拉博:人类演化的一扇窗口
 熵:时间是什么?
 从非生命到生命的过渡
 复杂性的宏大叙事:从基本粒子到第一批生物
 营冢鸟利用火山热
 阿尔迪皮特库斯:440万年前的埃塞俄比亚人科动物
 自然选择:桦尺蠖
 奥陶纪:珊瑚、三叶虫和笔石的时代
 液态水,不仅是溶剂,更是化学反应的催化剂
 尼安德特人:人类失落的表亲
 ASIMO:第一个类人机器人
 哪些条件促成了生命的出现?
 费米悖论与柏拉图洞穴:我们孤独还是盲目?
 水熊虫:挑战生物学法则的坚不可摧的生物
 图迈:已知最古老的人科动物之一
 生命之树:数十亿灭绝物种与一个共同祖先群体
 深渊中的生命:生物的极端适应
 蓝藻与氧气危机:一场原始的生态灾难
 从物质到生命:生物涌现的模糊边界
 世界上最小的青蛙:微型脊椎动物的生理秘密
 小冰期的解释
 生命之光:月球揭示的生物印记
 活光:生物发光的炫目秘密
 超越感官,伟大的科学革命
 原始汤:地球生命的化学摇篮
 世界人口:从十亿人到人口饱和
 生态与崩溃:复活节岛的案例
 分形:普遍的自组织结构