


人类行走:人科动物双足行走的起源
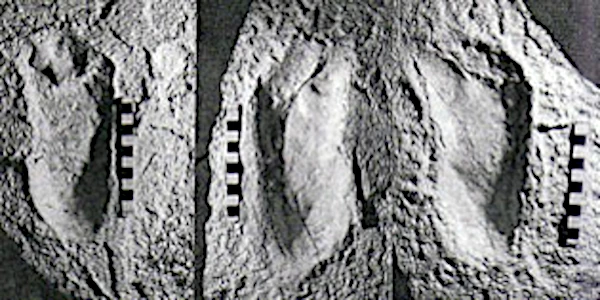
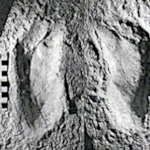
这些珍贵的足迹属于南方古猿阿法种,360万年前“印”在坦桑尼亚的火山灰中。这些足迹是人科动物双足行走的最古老直接证据。
图片来源:人类进化公共科学文献领域。
科学摘要
Astronoo的这篇文章追溯了人科动物双足行走的起源与进化。文章介绍了主要的解释理论(稀树草原说、解放双手、工具使用、蹲姿进食、水生说)并讨论了其局限性。图根原人、萨赫勒人、南方古猿阿法种的化石,尤其是莱托利足迹,记录了古老的直立行走,尽管最古老遗骸的解释仍存争议。文章还介绍了达努维乌斯·古根莫西,一种中新世大型猿类,其解剖结构揭示了双足行走可能的树栖起源。文章强调了这一适应的多因素性质,涉及生态、行为和解剖学约束,并围绕树栖垂直性提出了综合观点。
什么是双足行走,为什么它出现在人科动物中?
本文致力于双足行走,即用两个后肢运动,以及它在人科动物中的出现。但什么是双足行走,为什么它出现在人科动物中?答案在于漫长的进化过渡,其中化石和足迹构成了直接证据。双足行走在哺乳动物中是罕见的特征,但在人科动物中成为主导。坦桑尼亚莱托利归属于南方古猿阿法种的最古老且最不模糊的痕迹可追溯到360万年前;更古老的化石证据,如萨赫勒人(约700万年前)和图根原人(约600万年前)的,表明更古老的直立姿态,但其解释在古人类学家中仍存争议。多种假说试图解释双足行走的起源:稀树草原说、解放双手、工具使用、蹲姿进食或水生说。由于古环境数据表明是森林环境而非开阔环境,没有一种完全令人满意。很可能多种选择压力(生态、行为和饮食)共同促进了双足行走。它使双手得以解放、饮食范围扩大和工具使用成为可能,同时施加了生物力学约束。它说明了人类历史中环境、行为和解剖学之间的深刻互动。
值得一看
继续探索宇宙的这些主题:
进化背景与双足行走的出现
哺乳动物中罕见的运动方式
双足行走,即用两个后肢运动,在哺乳动物中是罕见的特征。尽管大多数陆生哺乳动物自三叠纪(−2.51亿至−1.996亿年前)以来就是四足动物,但一些类群发展出了双足运动。在人科动物中,它成为主导。
最早的双足人科动物
最早的灵长类出现在约7000万年前。人类谱系最古老的推定代表,萨赫勒人(约700万年前),发现于乍得,其头骨枕骨大孔的位置暗示直立姿态;同一地点归属的肢骨(股骨和尺骨)在2022年被解释为习惯性双足行走的迹象,但这一解读仍受到激烈争议(见下文专章)。肯尼亚的图根原人(约600万年前)的股骨形态也与直立行走相容。后来,南方古猿阿法种(约385万至295万年前)表现出确立良好的双足行走特征,由莱托利(坦桑尼亚)的化石足迹证实,可追溯到360万年前。这些足迹显示与现代人接近的跖行步态。
其他动物中的双足行走
多个类群共有的能力
双足行走并非人类独有。鸟类(兽脚类的后代)、一些哺乳动物(猫鼬、袋鼠、熊)以及许多灵长类(黑猩猩、倭黑猩猩等)可以暂时采用。在人科动物中,它变为永久性。
萨赫勒人:700万年前就有双足行走?
科学争议核心的股骨
2001年在乍得朱拉布沙漠发现的萨赫勒人头骨,绰号“图迈”,早在2002年就根据枕骨大孔的前移位置——脊柱插入处——被提出属于双足人亚科。同一地点发现但未正式与头骨关联的部分股骨和两根尺骨(前臂骨)长期处于争论之外。2020年,对该股骨的第一项研究得出结论,其形态与习惯性双足行走不相容。2022年,CNRS和普瓦捷大学的团队在Nature上发表了股骨和尺骨的详细分析,相反地得出结论,股骨表现出若干为双足行走选择的特征,同时保留树栖生活的迹象。
受到质疑的解释
这一解释此后受到质疑。2024年,包括2020年研究部分作者在内的团队在Journal of Human Evolution上发表了批评性回应,认为股骨没有表现出任何与南方古猿等习惯性陆生双足动物独家相关的特征。2026年初发表在Science Advances上的新比较再分析得出类似结论,并强调遗骸的极度碎片化性质(仅保留股骨干,缺少通常最具信息量的近端和远端)。因此争论仍然开放:萨赫勒人可能是偶发性而非习惯性双足动物,或者其双足动物地位在目前化石状态下仍无法证明。
开放的争论与方法学困难
注:此案例说明了古人类学中反复出现的困难:稀有且不完整的化石可能被同样合格的团队做出相反的解释,而共识不会迅速形成。
达努维乌斯·古根莫西:中新世大型猿类,介于悬吊与直立行走之间
“伸展肢体攀爬”
2019年根据在德国巴伐利亚哈默施米德遗址发现的遗骸描述的达努维乌斯·古根莫西,是一种化石大型猿类,可追溯到约1162万年前。与萨赫勒人或图根原人不同,它以相对完整的骨骼闻名,包括椎骨、肢骨和指骨。其解剖结构结合了与双足动物相当的伸展髋关节和膝关节,以及悬吊性大型猿类典型的细长前肢。研究人员为这种新颖的运动方式提出了extended limb clambering(“伸展肢体攀爬”)这一术语:达努维乌斯可能通过在树枝上直立行走,同时用手臂抓住上方的树枝来移动。
悬吊与双足行走之间的共同祖先?
这一发现表明,大型猿类和人类的最后共同祖先可能既不是严格的四足动物,也不是纯粹的悬吊动物,而是一种能够结合两种模式的动物,具有从树栖生活继承的直立躯干。这一假说仍存争议:早在2020年,其他古人类学家就对解释的某些要素(髋关节力学、远端胫骨方向、腰椎功能长度)提出异议,提醒达努维乌斯的遗骸虽然丰富,但也是碎片化的。
对树栖垂直性假说的贡献
无论如何,达努维乌斯为本文后文发展的树栖垂直性假说提供了具体的化石论据。
关于人类双足行走起源的主要理论
主要解释性假说
多种假说试图解释人科动物中双足行走的起源:
- 稀树草原说:直立行走可以让人看到高草之上并在开阔环境中移动。然而,古环境数据表明南方古猿进化于森林环境。
- 解放双手:直立解放手臂以携带食物。实验表明,黑猩猩在携带物体时双足行走显著增加。
- 工具使用:与前一项接近,该理论认为自由的双手用于操作工具,刺激了姿态和灵巧性的共同进化。
- 蹲姿进食:由Kingdon提出,唤起树栖或地面进食促进垂直姿态。
- 水生说:Niemitz主张半水生起源,双足行走在浅水中移动具有优势。人类体温调节会强化这一假说。
当前假说的局限性
推测性情景
所有这些理论仍是推测性的。化石稀有且部分,难以重建进化情景,正如上文关于萨赫勒人和达努维乌斯的争论所示。很可能多种选择压力——生态、行为、饮食——共同促进了双足行走。
走向综合:树栖垂直性
树栖遗产
垂直姿态在树栖猴类中常见,有助于攀爬或悬吊。人科动物的共同祖先在转向地面时保留这种垂直性的可能性是合理的。人类双足行走便是树栖适应的陆生延伸:这正是达努维乌斯·古根莫西的解剖结构所暗示的,其直立躯干与悬吊性前肢的关联为这一过渡提供了合理的模型。
双足行走:多因素过程
复杂的进化过渡
人类双足行走源于缓慢的进化过渡。它使双手解放、饮食扩大、工具使用成为可能……但也施加了生物力学约束。这一复杂的进化说明了人类历史中环境、行为和解剖学之间的深刻互动。
参考文献
- Smithsonian Institution - Australopithecus afarensis (新窗口)
- Encyclopædia Britannica - Bipedalism (新窗口)
- Daver, G., Guy, F., Mackaye, H.T. et al. (2022). Postcranial evidence of late Miocene hominin bipedalism in Chad. Nature, 609, 94–100. https://doi.org/10.1038/s41586-022-04901-z (新窗口)
- Cazenave, M., Pina, M., Hammond, A.S. et al. (2024/2025). Postcranial evidence does not support habitual bipedalism in Sahelanthropus tchadensis: A reply to Daver et al. (2022). Journal of Human Evolution, 198, 103557. https://doi.org/10.1016/j.jhevol.2024.103557 (新窗口)
- Williams, S.A., Wang, X., Araiza, I. et al. (2026). Earliest evidence of hominin bipedalism in Sahelanthropus tchadensis. Science Advances. https://doi.org/10.1126/sciadv.adv0130 (新窗口)
- Böhme, M., Spassov, N., Fuss, J. et al. (2019). A new Miocene ape and locomotion in the ancestor of great apes and humans. Nature, 575, 489–493. https://doi.org/10.1038/s41586-019-1731-0 (新窗口)
FAQ:关于双足行走的一切
什么是双足行走?
双足行走是用两个后肢运动。在人科动物中,它成为永久性,解放双手用于其他用途。它与四足行走(用四个肢体运动)不同。
双足行走何时出现在人科动物中?
人科动物中最早直接且不模糊的双足行走痕迹是坦桑尼亚的莱托利足迹,可追溯到360万年前,归属于南方古猿阿法种。更古老的化石,如萨赫勒人(约700万年前)和图根原人(约600万年前)的,表明晚中新世已有直立行走,但对最古老遗骸的这一解释仍存争议。
萨赫勒人真的是双足动物吗?
这是当今起源古人类学中争论最多的问题。2022年的一项研究得出结论,其股骨具有双足行走特征;2024年和2026年发表的再分析质疑这一解读,因为缺乏被认为专属习惯性陆生双足动物的特征。骨骼的碎片化性质目前无法做出定论。
关于双足行走起源的主要理论有哪些?
多种理论并存:稀树草原说、解放双手、工具使用、蹲姿进食和水生说。没有一种完全令人满意,很可能多种因素共同作用。
为什么双足行走被认为是多因素适应?
因为它源于多种选择压力:生态、行为和饮食。稀有且部分的化石阻碍了单一情景的重建,表明复杂且渐进的起源。
双足行走的优点和缺点是什么?
双足行走解放双手,允许携带物体、使用工具和扩大饮食。另一方面,它施加生物力学约束,特别是在骨盆、脊柱和下肢。
双足行走是人类独有的吗?
不。许多动物暂时或永久地双足行走:鸟类、袋鼠、猫鼬、一些灵长类。在人科动物中,双足行走成为主导且永久的运动方式。
 从第零定律到生成式AI:阿西莫夫的法则受到拷问
 复杂社会如何诞生与消亡?
 面对人工智能的大脑:一个被数据洪流淹没的器官的编年史
 AI学会了思考:人工意识会学会存在吗?
 未来的执念:当预测塑造生命
 下一个冰河时期,世界上哪些地区仍适合居住?
 快速进化:21世纪达尔文式的惊人发现
 致命失衡:无限小的潜藏力量
 演化的伟大过滤器:费米悖论的关键
 最后一次冰川冲击:新仙女木期及其对史前社会的影响
 向日葵为何朝向太阳?拉格朗日量给出的答案
 2026年世界人口:各大洲人口趋势
 生命为何源于失衡,又死于热力学平衡
 电磁波谱与视觉:我们的眼睛如何感知地球
 自我与非我:身份认同的一种简化物理解读
 分子钟:从随机突变到时间测量
 最小细胞:不可避免的涌现
 白沙脚印:美洲最早的人类足迹
 古人类:出现、扩张与灭绝
 生育率下降:人口灾难还是自然演化?
 自然选择 vs 偶然性:为什么进化不是抽奖?
 如果生命起源于地球呢?泛种论理论的一场革命
 将颠覆世界的重大分岔:生存还是崩溃?
 原始化学:最初的有机分子源自何处?
 一氧化碳与二氧化碳:两种气体,两种风险,两种生物机制
 自发同步:从物理到生命的普遍现象
 时间挑战:如何形象化十亿年?
 生命涌现的三个基本要素
 为什么90万年前人属差点灭绝?
 生命涌现的第一步
 影子生物圈
 人类中心主义的衰落:当宇宙使我们的重要性相对化
 鲎,一种活化石!
 地球上生命的起源:泛种论
 地球上生命的起源:白烟囱理论
 为什么是37摄氏度?
 我们在宇宙中孤独吗?科学与推测之间
 冰层中的生命痕迹:史前猛犸象的出现
 新仙女木期:消灭巨型动物的小冰期
 两大冰期:在冰冻地球的海洋中生存
 动物截肢后的再生:组织的再生长
 生命的极限:墨菲斯托,地狱深渊之虫
 太空中发现固体巴基球
 人类行走:人科动物双足行走的起源
 卡拉博:人类演化的一扇窗口
 熵:时间是什么?
 从非生命到生命的过渡
 复杂性的宏大叙事:从基本粒子到第一批生物
 营冢鸟利用火山热
 阿尔迪皮特库斯:440万年前的埃塞俄比亚人科动物
 自然选择:桦尺蠖
 奥陶纪:珊瑚、三叶虫和笔石的时代
 液态水,不仅是溶剂,更是化学反应的催化剂
 尼安德特人:人类失落的表亲
 ASIMO:第一个类人机器人
 哪些条件促成了生命的出现?
 费米悖论与柏拉图洞穴:我们孤独还是盲目?
 水熊虫:挑战生物学法则的坚不可摧的生物
 图迈:已知最古老的人科动物之一
 生命之树:数十亿灭绝物种与一个共同祖先群体
 深渊中的生命:生物的极端适应
 蓝藻与氧气危机:一场原始的生态灾难
 从物质到生命:生物涌现的模糊边界
 世界上最小的青蛙:微型脊椎动物的生理秘密
 小冰期的解释
 生命之光:月球揭示的生物印记
 活光:生物发光的炫目秘密
 超越感官,伟大的科学革命
 原始汤:地球生命的化学摇篮
 世界人口:从十亿人到人口饱和
 生态与崩溃:复活节岛的案例
 分形:普遍的自组织结构