


阿尔迪皮特库斯:440万年前的埃塞俄比亚原始人类
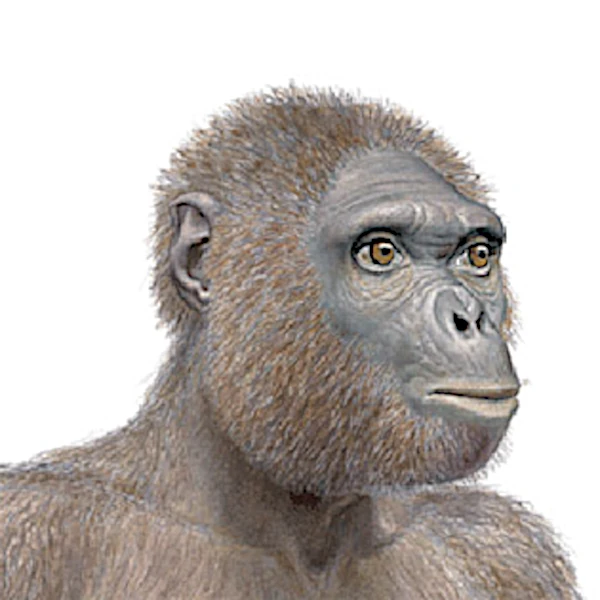
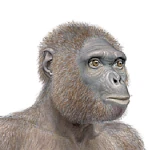
阿尔迪的艺术复原图,她是已灭绝的原始人类物种阿尔迪皮特库斯·拉米杜斯的一只雌性个体,生活在大约440万年前。
阿尔迪皮特库斯·拉米杜斯是已知最古老的原始人类之一,发现于埃塞俄比亚的阿瓦什河谷,出土了至少35个同种其他个体的化石碎片。
图片来源:John Gurche (新窗口) — 公共领域。
科学摘要
Astronoo的文章介绍了发现于埃塞俄比亚阿法尔地区、距今440万年的标本阿尔迪皮特库斯·拉米杜斯(阿尔迪)。这一重大发现颠覆了关于早期原始人类演化的观念。对其部分骨骼的研究揭示了一种独特的解剖学镶嵌特征,结合了地面上已确立的双足行走与持续的树栖适应。其发现者将其环境描述为林地而非开阔稀树草原,这一分析彻底改变了关于双足行走起源的选择压力的假说,尽管这一点在科学界仍存在争议。阿尔迪皮特库斯因此占据了一个关键位置,接近人类谱系与黑猩猩谱系的分歧点,为我们演化史的最初篇章提供了线索。
为什么阿尔迪皮特库斯的发现彻底改变了我们对人类起源的理解?
本文致力于介绍发现于埃塞俄比亚、距今440万年的化石原始人类阿尔迪皮特库斯·拉米杜斯。但为什么这一发现对古人类学家如此重要?答案在于这个绰号为“阿尔迪”的标本能告诉我们关于我们谱系演化的信息。在它被发现之前,人们认为双足行走这一人类特征是在非洲稀树草原扩张的背景下出现的。根据其发现者的说法,“阿尔迪”生活在林地环境中,这颠覆了这一叙事;然而,其他团队质疑这一解读,并主张一种更开阔的树栖稀树草原镶嵌环境(见下文)。其解剖结构是原始特征和衍生特征的迷人混合体。它具有宽阔的骨盆和枕骨大孔位置,表明地面上的双足行走,但也有适于树栖生活的可抓握的大脚趾和四肢。这种前所未有的组合表明,双足行走不一定起源于对开阔稀树草原的适应,而可能是在更多林地的背景下,为了便于树木间移动或采集食物而出现的。因此,阿尔迪皮特库斯不是直接祖先,而是我们谱系与黑猩猩谱系分歧点附近一个替代演化路径的特殊见证。
值得一看
继续探索宇宙的这些主题:
阿尔迪:古人类学中的重大发现
发现于埃塞俄比亚阿法尔地区的阿尔迪皮特库斯·拉米杜斯,代表了20世纪最重要的古人类学发现之一。第一批化石碎片(牙齿和下颌骨)于1992年至1993年由蒂姆·怀特、诹访元和阿斯富·贝尔哈内领导的团队发掘,但直到1994年,绰号为“阿尔迪”的部分骨架才在中阿瓦什河谷的阿拉米斯遗址被发现。其完整分析直到2009年才发表,时隔十五年,因为骨骼脆弱且被压碎,需要长期的数字修复工作。根据怀特团队的说法,这一距今440万年的原始人类生活在以林地为主的环境中,但这一解读仍有争议(见下文关于此争议的章节)。
独特的解剖学特征
阿尔迪皮特库斯展示了原始特征和衍生特征的迷人混合。 化石显示该生物身高约1.20米,体重约50公斤(对雌性阿尔迪个体的估计)。 其大脑大小约为\(300 \text{ 至 } 350 \text{ cm}^3\),与现代黑猩猩相当。其齿列显示犬齿缩小,不同于大型猿类,表明攻击性较低的社群行为。宽阔的骨盆和枕骨大孔的位置表明适应双足行走,尽管其脚部保留了用于爬树的對向拇指(可抓握的大脚趾)。
树木与地面之间的生活方式
与之前将双足行走的出现置于开阔稀树草原环境的理论相反,蒂姆·怀特团队将阿尔迪皮特库斯的环境解释为以林地为主的环境。这一解释导致重新思考促进双足行走的演化压力:它可能出现在分散的树木之间移动或在混合环境中运输食物,而不是作为对景观开阔化的反应。阿尔迪皮特库斯因此代表了结合树栖和陆地移动的生活方式的显著适应,尽管森林覆盖的确切程度在研究者中仍有争议。
阿尔迪皮特库斯:早期人亚科
人类谱系核心的分类
距今440万年的阿尔迪皮特库斯·拉米杜斯不仅是一种古老的原始人类,它属于人亚科,即比猩猩更接近人类的谱系。
原始特征和衍生特征的独特混合
这一分类意味着阿尔迪皮特库斯与黑猩猩和人类拥有共同祖先,但位于直接通向人类谱系的分支上。其独特特征组合,混合了偶发性双足行走和树栖能力,说明了人亚科特征(尤其是双足行走)的渐进演化。
人类-黑猩猩分化的关键见证
作为人亚科,阿尔迪皮特库斯为我们谱系与黑猩猩谱系分化的早期阶段提供了关键线索,从而阐明了古代大型猿类与较晚的南方古猿之间的过渡。它在人族中的位置使其成为理解人类起源不可或缺的关键,尽管少数研究者(特别是E.萨米恩托)质疑阿尔迪皮特库斯某些特征的人亚科地位,认为其解剖学整体更符合基底大型猿类而非人类谱系成员。
注意:
人科包括所有现存和化石的大型猿类,包括人类,而人亚科指排除猩猩、包含大猩猩、黑猩猩和人类的亚科。因此,所有人亚科都是人科,但并非所有人科都是人亚科。
在人类演化树中的位置
阿尔迪皮特库斯·拉米杜斯比著名的露西所属的南方古猿阿法种早大约一百万年。它位于人类谱系与黑猩猩谱系的分化点附近,估计在\(5 \text{ 至 } 7 \text{ 百万年}\)前。这一年代位置使其成为理解后来原始人类适应性的关键见证。最近的发现表明,阿尔迪皮特库斯可能不是智人的直接祖先,而是探索替代演化路径的旁系分支。
有争议的环境:茂密森林还是树栖稀树草原?
怀特团队的初步解读
蒂姆·怀特团队最引人注目的主张——林地甚至森林环境而非开阔稀树草原——并未达成共识。2010年,由地球化学家瑟尔·瑟林(犹他大学)领导的团队重新审查了怀特及其同事发表的相同同位素和沉积学数据,提出了不同的解读:阿拉米斯的环境更符合古生态学家所说的树栖稀树草原或灌木稀树草原,木本植被覆盖率估计为25%或更低,而非严格意义上的“森林斑块”。
仍然开放的学术辩论
怀特团队回应称,其解读基于地质学、古土壤同位素、植物化石、无脊椎动物、小型哺乳动物、鸟类和大型哺乳动物的生态形态学等汇聚的证据,而非仅基于反对者强调的同位素化学。然而,双方在一个观点上达成一致:完全开阔的草质稀树草原作为双足行走起源地的经典假说必须被放弃,以解释阿尔迪皮特库斯双足行走的出现。因此,争论更多地涉及树木的密度而非存在与否,并且至今学术上仍然开放:谨慎建议将“森林环境”视为发现者的解读而非最终确定的事实。
犬齿两性异形与社会生活:走向祖先的一夫一妻制?
缩小的犬齿作为攻击性降低的指标
怀特团队最受争议的论点之一涉及阿尔迪皮特库斯的社群行为。其犬齿不发达,雌雄之间差异很小,自2009年以来被解释为雄性间攻击性降低的指标,与C.欧文·洛夫乔伊提出的“配偶供给”假说相关:相对稳定的配偶关系促进了食物分享,并间接促进了双足行走(双手因此可以自由搬运)。
犬齿两性异形与现代人类相当
2021年发表在《美国国家科学院院刊》上由诹访元及其同事进行的一项研究,基于所有可用的阿尔迪皮特库斯·拉米杜斯犬齿化石,细化了这一观察:该物种犬齿的大小两性异形显著低于倭黑猩猩(现存大型猿类中两性异形最小、攻击性最低的),且接近现代人类观察到的变异性。这一结果强化了雄性内攻击性早期减少的观点,与双足行走的出现大致吻合。
关于社会系统的矛盾方法
然而,这一解读并未被整个学界接受:2011年一项基于第二和第四指比例(产前雄激素暴露的间接标记)的研究将阿尔迪皮特库斯归类为倾向于多妻制而非一夫一妻制的物种,与南方古猿阿法种相反。这两种独立方法——齿列与手指比例——之间的分歧说明了从几十块化石重建已灭绝物种的社群行为是多么微妙的工作,并促使我们将阿尔迪皮特库斯祖先一夫一妻制的假说视为合理但未被证实。
比较表格
| 物种 | 年代(百万年) | 颅容量 | 平均身高 | 平均体重 | 移动方式 | 食性 | 环境 |
|---|---|---|---|---|---|---|---|
| 阿尔迪皮特库斯·拉米杜斯 | 4.4 | 300–350 cm³ | ≈ 1.20 m | ≈ 50 kg | 偶发性双足行走 + 树栖生活 | 杂食(果实、种子、根、小型无脊椎动物) | 林地环境(确切性质有争议:开阔森林或树栖稀树草原) |
| 南方古猿湖畔种 | 4.2–3.9 | ≈ 365–370 cm³ | ≈ 1.20–1.40 m | ≈ 45–55 kg | 比阿尔迪皮特库斯更确立的双足行走,但仍能攀爬 | 以果实为主,含块茎和种子 | 开阔林地环境和稀树草原地带 |
| 南方古猿阿法种(露西) | 3.2 | 400–450 cm³ | ≈ 1.05–1.50 m | ≈ 30–45 kg | 确立的双足行走,残留攀爬 | 主要为果实性,辅以块茎 | 东非的树栖稀树草原 |
| 能人 | 2.4–1.6 | 600–700 cm³ | ≈ 1.25–1.40 m | ≈ 35–50 kg | 完全双足行走,石器 | 杂食,肉类消费增加 | 东非的稀树草原和开阔景观 |
| 直立人 | 1.9–0.1 | 850–1100 cm³ | ≈ 1.50–1.80 m | ≈ 50–70 kg | 现代双足行走 | 机会主义杂食,控制用火 | 非洲,后至欧亚大陆(多样气候) |
| 智人 | 0.3 – 现在 | 1300–1600 cm³ | ≈ 1.60–1.85 m | ≈ 55–90 kg | 现代双足行走 | 杂食,农业,畜牧,象征文化 | 所有地理区域,高适应能力 |
- 来源:White T. et al. (2009), Science ; Smithsonian Human Origins ; Tattersall I. (2012), Masters of the Planet, Palgrave Macmillan ; Antón S.C. (2003), Natural History of Homo erectus.
参考文献
- White, T. D., Asfaw, B., Beyene, Y., Haile-Selassie, Y., Lovejoy, C. O., Suwa, G. & WoldeGabriel, G. (2009). Ardipithecus ramidus and the Paleobiology of Early Hominids. Science, 326(5949), 75-86. DOI: 10.1126/science.1175802. (新窗口)
- Lovejoy, C. O., Suwa, G., Spurlock, L., Asfaw, B. & White, T. D. (2009). The Pelvis and Femur of Ardipithecus ramidus: The Emergence of Upright Walking. Science, 326(5949), 71, 71e1-71e6. DOI: 10.1126/science.1175831. (新窗口)
- Suwa, G., Asfaw, B., Kono, R. T., Kubo, D., Lovejoy, C. O. & White, T. D. (2009). The Ardipithecus ramidus Skull and Its Implications for Hominid Origins. Science, 326(5949), 68, 68e1-68e7. DOI: 10.1126/science.1175825. (新窗口)
- Cerling, T. E., Levin, N. E., Quade, J., Wynn, J. G., Fox, D. L., Kingston, J. D., Klein, R. G. & Brown, F. H. (2010). Comment on the Paleoenvironment of Ardipithecus ramidus. Science, 328(5982), 1105d. DOI: 10.1126/science.1185274. (新窗口)
- Suwa, G., Sasaki, T., Semaw, S. et al. (2021). Canine Sexual Dimorphism in Ardipithecus ramidus Was Nearly Human-like. PNAS, 118(49), e2116630118. DOI: 10.1073/pnas.2116630118. (新窗口)
- Nelson, E., Rolian, C., Cashmore, L. & Shultz, S. (2011). Digit Ratios Predict Polygyny in Early Apes, Ardipithecus, Neanderthals and Early Modern Humans but not in Australopithecus. Proceedings of the Royal Society B, 278(1711), 1556-1563. DOI: 10.1098/rspb.2010.1740. (新窗口)
- Smithsonian National Museum of Natural History - Ardipithecus ramidus (新窗口)
FAQ:关于阿尔迪皮特库斯·拉米杜斯的一切
什么是阿尔迪皮特库斯·拉米杜斯?它在哪里被发现?
阿尔迪皮特库斯·拉米杜斯是一种已灭绝的原始人类物种,距今440万年。其化石发现于埃塞俄比亚阿法尔地区的阿拉米斯遗址。最完整的标本绰号为“阿尔迪”,自1994年起由古人类学家蒂姆·怀特领导的国际团队发掘。这一发现意义重大,因为它提供了接近人类谱系与黑猩猩谱系分化点的原始人类的罕见视角。
为什么阿尔迪皮特库斯的发现对理解人类演化很重要?
在阿尔迪皮特库斯之前,人们认为双足行走是对非洲稀树草原扩张的反应。其发现者将阿尔迪皮特库斯置于以林地为主的环境中,这将反驳这一假说——然而这一解读被其他支持树栖稀树草原的团队所质疑。无论采用哪种解读,阿尔迪皮特库斯的解剖结构——结合了地面双足行走和树栖适应——表明双足行走很可能并非出现在完全开阔的稀树草原中。此外,其接近人类/黑猩猩分化的年代位置使其成为人类谱系演化最早阶段的关键见证。
阿尔迪皮特库斯·拉米杜斯的主要解剖学特征是什么?
阿尔迪皮特库斯展示了迷人的特征镶嵌。其体型适中(阿尔迪个体约1.20米,50公斤),大脑较小(300-350 cm³),与黑猩猩相当。其齿列犬齿缩小,两性差异小,已更接近人类。其骨盆宽阔,枕骨大孔位置表明双足行走,但其脚部保留了典型的树栖生活的可抓握大脚趾(對向拇指),表明其既适应双足行走也适应攀爬。
阿尔迪皮特库斯如何定位于人类家谱中?
大多数研究者认为阿尔迪皮特库斯属于人亚科,即属于排除猩猩、包含大猩猩、黑猩猩和人类的亚科(少数研究者质疑此地位)。它比南方古猿(如露西)更古老,位于人类与黑猩猩谱系分化点附近,约500至700万年前。它可能是我们直系祖先的旁系分支,而非智人的直接祖先。
阿尔迪皮特库斯的环境和生活方式是怎样的?
根据蒂姆·怀特团队的说法,阿拉米斯遗址的分析表明阿尔迪皮特库斯生活在林地环境中,由开阔森林和林地组成,与被认为是人类摇篮的开阔稀树草原截然不同。然而,由瑟尔·瑟林领导的竞争团队将相同数据重新解释为木本覆盖减少的树栖稀草原证据:关于植被覆盖确切密度的争论仍然悬而未决。这种陆地与树栖混合的生活方式,无论如何表明了一种由果实、种子、根和小型无脊椎动物组成的机会主义杂食性饮食,使其能够适应栖息地中的不同资源。
我在哪里可以找到关于阿尔迪皮特库斯的更多科学信息?
主要科学出版物可在Science(特别是2009年White等人的文章)和《美国国家科学院院刊》(Suwa等人,2021年)等期刊上获得。在线参考资料包括史密森尼人类起源计划 (新窗口)网站和SAO/NASA天体物理学数据系统(ADS) (新窗口)等数据库,用于搜索学术文章。
 从第零定律到生成式AI:阿西莫夫的法则受到拷问
 复杂社会如何诞生与消亡?
 面对人工智能的大脑:一个被数据洪流淹没的器官的编年史
 AI学会了思考:人工意识会学会存在吗?
 未来的执念:当预测塑造生命
 下一个冰河时期,世界上哪些地区仍适合居住?
 快速进化:21世纪达尔文式的惊人发现
 致命失衡:无限小的潜藏力量
 演化的伟大过滤器:费米悖论的关键
 最后一次冰川冲击:新仙女木期及其对史前社会的影响
 向日葵为何朝向太阳?拉格朗日量给出的答案
 2026年世界人口:各大洲人口趋势
 生命为何源于失衡,又死于热力学平衡
 电磁波谱与视觉:我们的眼睛如何感知地球
 自我与非我:身份认同的一种简化物理解读
 分子钟:从随机突变到时间测量
 最小细胞:不可避免的涌现
 白沙脚印:美洲最早的人类足迹
 古人类:出现、扩张与灭绝
 生育率下降:人口灾难还是自然演化?
 自然选择 vs 偶然性:为什么进化不是抽奖?
 如果生命起源于地球呢?泛种论理论的一场革命
 将颠覆世界的重大分岔:生存还是崩溃?
 原始化学:最初的有机分子源自何处?
 一氧化碳与二氧化碳:两种气体,两种风险,两种生物机制
 自发同步:从物理到生命的普遍现象
 时间挑战:如何形象化十亿年?
 生命涌现的三个基本要素
 为什么90万年前人属差点灭绝?
 生命涌现的第一步
 影子生物圈
 人类中心主义的衰落:当宇宙使我们的重要性相对化
 鲎,一种活化石!
 地球上生命的起源:泛种论
 地球上生命的起源:白烟囱理论
 为什么是37摄氏度?
 我们在宇宙中孤独吗?科学与推测之间
 冰层中的生命痕迹:史前猛犸象的出现
 新仙女木期:消灭巨型动物的小冰期
 两大冰期:在冰冻地球的海洋中生存
 动物截肢后的再生:组织的再生长
 生命的极限:墨菲斯托,地狱深渊之虫
 太空中发现固体巴基球
 人类行走:人科动物双足行走的起源
 卡拉博:人类演化的一扇窗口
 熵:时间是什么?
 从非生命到生命的过渡
 复杂性的宏大叙事:从基本粒子到第一批生物
 营冢鸟利用火山热
 阿尔迪皮特库斯:440万年前的埃塞俄比亚人科动物
 自然选择:桦尺蠖
 奥陶纪:珊瑚、三叶虫和笔石的时代
 液态水,不仅是溶剂,更是化学反应的催化剂
 尼安德特人:人类失落的表亲
 ASIMO:第一个类人机器人
 哪些条件促成了生命的出现?
 费米悖论与柏拉图洞穴:我们孤独还是盲目?
 水熊虫:挑战生物学法则的坚不可摧的生物
 图迈:已知最古老的人科动物之一
 生命之树:数十亿灭绝物种与一个共同祖先群体
 深渊中的生命:生物的极端适应
 蓝藻与氧气危机:一场原始的生态灾难
 从物质到生命:生物涌现的模糊边界
 世界上最小的青蛙:微型脊椎动物的生理秘密
 小冰期的解释
 生命之光:月球揭示的生物印记
 活光:生物发光的炫目秘密
 超越感官,伟大的科学革命
 原始汤:地球生命的化学摇篮
 世界人口:从十亿人到人口饱和
 生态与崩溃:复活节岛的案例
 分形:普遍的自组织结构