


从物质到生命:生物涌现的模糊边界
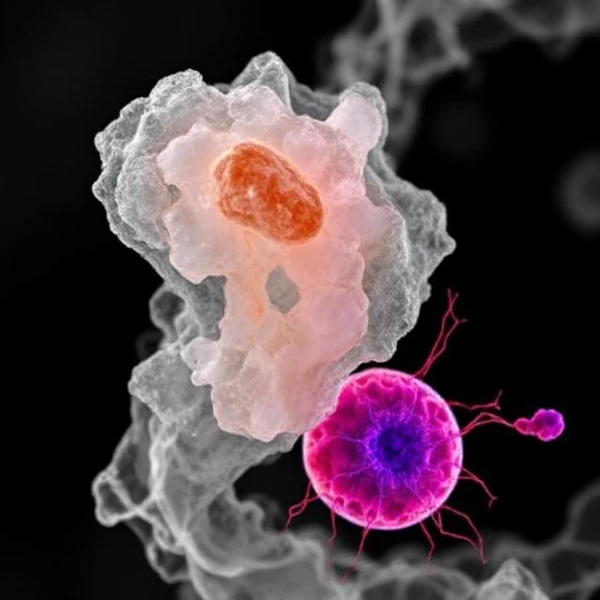
电子显微镜形态学透视:受分形启发的矿物结构与活跃的活细胞之间的惊人对比,凸显了地质仿生学与细胞机器之间的视觉混淆。
图片来源:astronoo.com(新窗口),AI生成图像,公有领域。
科学摘要
Astronoo的文章探讨了惰性物质与生命之间的边界,分析了定义生命的物理化学标准。文章表明,无论是自组织矿物结构、朊病毒(错误折叠的蛋白质),还是病毒,都没有明确跨越生命的阈值,而凝聚层(水性微滴)和RNA世界则占据了中间地带。文章强调了生物信息和进化记忆的核心作用,它们将细胞与简单的化学系统区分开来。文章还探讨了原细胞作为前生命化学与生物学之间的桥梁、从RNA世界到DNA-蛋白质世界的过渡,以及最后普遍共同祖先(LUCA)。最后,文章质疑了生命的稳健性及其在宇宙其他地方出现的可能性。
在矿物与细胞之间,究竟什么在活着?
本文致力于探讨惰性物质与生命之间的边界,这是现代生物学中最微妙的问题之一。活细胞无疑是一个生命系统。但病毒、朊病毒或某些能够自组织生长的晶体呢?答案在于化学与生物学、热力学与信息之间的灰色地带。没有任何“魔法分子”标志着生命的出现。生命源于物质的渐进复杂化,其中交织着自组织、催化、区室化和信息处理。生命因此可以被定义为一种信息化的物质,能够代谢、繁殖、进化并保存其过去的记忆。理解这一过渡,就是理解盲目的化学如何能够产生一个能够认出自己活着的实体。本文还探讨了地球上生命的顽强性及其在宇宙其他地方出现的可能性。
值得一看
继续探索宇宙的这些主题:
惰性与生命之间的模糊阈值
物质的渐进复杂化
生命不是物质的平凡属性。它并非突然出现,而是在化学结构渐进复杂化的终点似乎才出现。生命的起源位于化学与生物学、热力学与信息之间的灰色地带。
从病毒到自组织矿物结构
如果活细胞无疑是一个生命系统,那么病毒、朊病毒或某些模仿生物生长的自组织矿物结构呢?这些系统拥有生命的某些特性——生长、繁殖、结构缺陷的传递——但没有任何一个系统拥有全部特性。它们说明了惰性与生命之间边界的渐进性。
生命的物理化学定义
一系列标准而非单一的定义
今天的生物学家倾向于一系列标准,而非单一明确的定义。生物必须表现出一定数量的基本特征:代谢能量和繁殖的能力,以及对环境做出反应和进化的能力。更准确地说,六个操作标准可以表征生命:区室化(内部与外部的界定)、代谢(能量和物质的流动)、可传递的信息(基因组或可复制的结构)、带变异的复制、达尔文进化(自然选择),以及远离热力学平衡的维持。这些标准并非从一开始就全部存在:它们可能是逐步出现的。
生命边界上标准的模糊性
然而,这些标准在生命的边界上仍然模糊。例如,病毒没有自己的代谢,但一旦进入宿主细胞,就能繁殖和进化。病毒通常被置于生命的边界:它们拥有遗传信息并进化,但完全依赖宿主细胞进行复制,并且没有自主代谢。相反,晶体可以生长和复制,但从来不是活的。
热力学边界:不可能的秩序
生命,远离平衡的耗散系统
生命是一个远离平衡的耗散系统,通过消耗自由能并向环境输出熵来局部维持秩序。它不违背热力学第二定律:它利用其定律。就像冰箱通过消耗电力从冷室提取热量一样,细胞通过向外部散发热量和废物来维持其内部秩序。物理学家伊利亚·普里高津表明,远离平衡的耗散结构是一种普遍现象,生命只是其特别复杂的表现。
高度不可能的大分子
这种动力学依赖于一种高度不可能的化学结构:能够自我复制的大分子。没有这一特性,任何自组织系统都不能声称具有生命的地位。生物秩序不是对熵的否定,而是其必然结果:生命是一台在自身周围产生无序以保持自身内部秩序的机器。
与生命接近的结构的比较
下表根据繁殖能力、代谢、内部组织和生物学地位,比较了位于生命边界的几个实体。
| 实体 | 繁殖 | 代谢 | 组织 | 地位 |
|---|---|---|---|---|
| 自组织矿物结构 | 通过添加基元生长 | 无 | 周期性秩序 | 惰性 |
| 朊病毒 | 有(蛋白质转化) | 无 | 致病蛋白质 | 非生命 |
| 凝聚层 | 可能生长和分裂,但没有完整的遗传 | 无 | 胶体微区室 | 生命的前体 |
| 前生命(自组织化学系统) | 部分(化学循环) | 部分(原代谢) | 远离平衡的动态组织 | 生命的极限 |
| RNA世界 | 假设性(自我复制) | 催化/可能的原代谢 | RNA催化剂网络 | 原生命 |
| 病毒 | 有(在宿主细胞中) | 无 | 组织化的蛋白质结构 | 极限 |
| 活细胞 | 有 | 有 | 复杂,区室化 | 生命 |
中间世界的假设
既非真正活着也非完全惰性的系统
现代假设,如前生命或RNA世界,假设存在中间系统:既非真正活着,也非完全惰性。这些系统可能拥有初步的自我复制、进化甚至催化能力,为向活细胞的相变开辟了道路。
物质的觉醒:生命核心的信息
信息,生命的基本属性
生命最基本的特征之一是存储、处理和传递信息的能力。常被比作代码的DNA是一种分子,但也是指令的载体。物理支持(含氮碱基、磷酸、糖)与信息内容(编码序列、调控)之间的这种二元性为生物学所特有,在惰性物质中不存在。
算法和进化的逻辑
生命基于算法逻辑:转录、翻译、反馈控制、细胞内信号传导。这些操作不仅转化能量或物质,还管理进化程序的连续性。即使是处于生命边界的病毒,也利用遗传信息作为复制和进化的载体。
信息化物质与进化记忆
生命因此可以被定义为能够自我维持和带变异自我复制的信息化物质。与秩序静态且没有记忆的晶体不同,活细胞拥有编码功能的基因组,这些功能可以突变、被修正或被选择。这种对生命的信息化方法将生物学、热力学和计算理论联系起来。
在这个意义上,地球上生命的出现标志着一个关键过渡:从盲目的化学到具有进化记忆的化学。生命因此不仅是发生反应的物质,而且是保存过去的同时将自己投射到未来的物质。
原细胞:区室化、能量与信息
脂质囊泡:自发的膜
原细胞是自组织结构,浓缩生物分子并将其与环境隔离。在水中,两亲性分子如脂肪酸在没有酶的情况下自发组装成双层,形成囊泡。这些前生命膜可能由简单脂肪酸出现,这些脂肪酸在前生命条件下合成并在陨石中被检测到。
凝聚层:无膜的区室
凝聚层是由液-液相分离产生的液滴,由肽或核酸组成。早在1929年由奥帕林描述,它们浓缩某些分子,生长并机械分裂。没有完整的遗传,它们提供了有利于化学反应的微环境。
矿物催化剂与膜形成
2024年,Neal Devaraj的团队表明,半胱氨酸和硫酯在二氧化硅存在下自发形成脂质。这些脂质随后组装成原细胞型囊泡,足够稳定以容纳生化反应。二氧化硅作为矿物催化剂,暗示了从矿物化学到生物区室化的合理路径。
区室与复制分子的耦合
仅靠区室化是不够的:还需要能够存储信息和复制的分子,如RNA。Jack Szostak的工作表明,脂肪酸囊泡可以封装RNA,而蒙脱石大大增加了囊泡形成并有助于RNA聚合。也许正是在区室、能量和信息之间的这种耦合中,才存在着生命的真正阈值。
从RNA世界到DNA-蛋白质世界
核酶:催化的RNA
RNA世界假设提出,在DNA和蛋白质之前,RNA既作为信息载体又作为催化剂。1989年诺贝尔化学奖授予的核酶的发现证实,同一分子可以携带信息并催化反应。
核糖体:RNA世界的活化石
在核糖体中,催化肽键形成的是核糖体RNA,而不是蛋白质。因此,核糖体部分是核酶,是RNA世界的遗迹。向蛋白质的过渡是通过逐步委托进行的,RNA保留了最古老的功能。
向DNA的过渡
DNA取代RNA作为遗传信息的载体,因为它化学上更稳定。更脆弱的RNA仍然是暂时的中间体,而DNA确保长期记忆。这种角色分离——DNA用于存储,RNA用于信息,蛋白质用于催化——是所有现代生物学的特征。
LUCA:最后的普遍共同祖先
所有当前的生命形式都起源于最后的普遍共同祖先,LUCA。2024年的一项研究估计,它生活在大约42亿年前,基因组约为2.75 Mb,编码近2,600种蛋白质。厌氧且可能是产醋酸的LUCA已经是已建立生态系统的一部分,参与了与病毒的军备竞赛。它的极早出现表明,生命的几个步骤基于合理的物理化学机制,尽管这种出现的宇宙频率仍然未知。
既然生命是化学的,那么与无生命物的边界在哪里?
难以捉摸的边界
人们可能认为,作为一种物理化学现象,生命应该在分子复杂性的明确可识别阈值处出现。然而,这个边界仍然难以捉摸。生命不是通过“魔法分子”的突然添加而出现的,而是通过一个渐进的过渡,其中交织着自组织、催化反应、区室化和信息处理。
功能网络的涌现属性
没有明确阈值的原因在于化学自组织过程的连续性。在一个由热力学和复杂性定律支配的宇宙中,某些结构可以暂时自我维持,但不能进行达尔文进化。因此,生命是一种涌现属性,不是单一化合物的,而是功能网络的:复制、变异、选择。
这种模糊性解释了为什么不同学科对生命的定义各不相同:生物学家强调繁殖,化学家强调自催化,物理学家强调远离平衡的动力学,计算机科学家强调处理和传递信息的能力。因此,边界不是一条线,而是一个过渡带,一个物质开始作用于自身的复杂性空间。
生命的顽强性难道不是它在宇宙中无处不在的证据吗?
从极端微生物到极端环境
在地球上,生命出现在曾经被认为与其存在不相容的条件下:高压热液喷口、酸性湖泊、地表下数公里的深层岩石、超干旱沙漠、强辐射或富含放射性核素的环境。这些极端微生物挑战了我们以前的宜居性标准,并大大拓宽了潜在宜居环境的范围。其中,嗜热菌如Pyrolobus fumarii在超过100°C下生存,嗜酸菌如Picrophilus oshimae耐受接近零的pH,而Deinococcus radiodurans能承受数千戈瑞的辐射剂量。
缓步动物:生存冠军
缓步动物是微小的显微镜动物,严格来说不是极端微生物——它们耐受极端条件但并不在其中繁盛——但它们保持着生存记录。通过进入隐生状态,它们可以暂停代谢,在-272°C到+149°C的温度、太空真空、电离辐射和长期脱水下生存。缓步动物在2007年(FOTON-M3任务)暴露于太空真空并存活下来,尽管暴露于太阳紫外线被证明更加致命。
一种稳健但非普遍的现象
这种韧性表明,生命不是脆弱的意外,而是一种稳健的现象,只要有能量源和复杂分子可用,就能适应极端的化学和热梯度。然而,地球极端微生物的稳健性表明,生命一旦出现,就能适应极端条件,但这并不证明生命本身的出现是宇宙中的常见现象。生命的适应性与出现概率之间的区别仍然是天体生物学中最迷人的未解问题之一。
走向外星生命?
在火星上,毅力号火星车(Mars 2020任务)正在积极寻找古代生物特征的痕迹,这些痕迹来自红色星球表面曾有液态水的时代。更远的地方,NASA于2024年10月发射的欧罗巴快帆任务正前往木星的冰卫星欧罗巴,其地下海洋可能提供生命所需的条件。探测器将从2030年开始进行49次近距离飞越,以确定地表下是否存在宜居环境。然而,生命的普遍性仍然是一个假设:迄今为止,尚未在系外行星上检测到共识确认的生物特征。地球上生命的顽强性是强有力的线索,但还不是其宇宙普遍性的直接证据。
参考文献
- NASA Astrobiology — Origins of Life(新窗口)
- 1989年诺贝尔化学奖 — RNA的催化特性(Altman & Cech)(新窗口)
- Encyclopédie de l'environnement — 一位热爱天文学的地质学家眼中的生命起源(新窗口)
- Encyclopædia Universalis — 生命的起源(André Brack)(新窗口)
- Cho et al. (2024) — Protocells by spontaneous reaction of cysteine with short-chain thioesters, Nature Chemistry(新窗口)
- Moody et al. (2024) — The nature of the last universal common ancestor and its impact on the early Earth system, Nature Ecology & Evolution(新窗口)
- Gianni et al. (2026) — A small polymerase ribozyme that can synthesize itself and its complementary strand, Science(新窗口)
- RNA world — Wikipedia(RNA世界假设、核酶)(新窗口)
- NASA Science — Europa Clipper,木星冰卫星探测任务(新窗口)
- Protocell — Wikipedia(脂质囊泡、凝聚层、前生命区室化)(新窗口)
FAQ:关于惰性与生命边界的一切
活细胞与晶体有什么区别?
活细胞拥有代谢、带变异的自我复制能力以及编码在其基因组中的进化记忆。晶体可以生长,并在某些条件下复制,但其秩序是周期性的、静态的,并且缺乏功能信息。细胞转化能量和物质以维持远离平衡,而晶体仍然是一个被动系统,接近热力学平衡。
病毒是活的吗?
病毒占据边界位置。没有自己的代谢,它们只能通过劫持宿主细胞的机器来繁殖。然而,它们拥有基因组,通过自然选择进化,并带变异复制。病毒通常被置于生命的边界:它们拥有一些基本属性,但不是全部。它们既不是完全活的,也不是完全惰性的,完美地说明了惰性与生命之间边界的渐进性。
什么是RNA世界?
RNA世界是一个假设,认为能够同时存储遗传信息和催化化学反应(核酶)的RNA先于DNA和蛋白质。这个系统将构成一种原生命形式,能够自我复制和初步进化,在现代区室化细胞出现之前。2026年,QT45的发现——一种能够合成自身拷贝的45核苷酸聚合酶核酶——为小聚合酶核酶的合理性提供了额外的实验论据,但本身并未证明完整的前生命场景。
什么是原细胞?
原细胞是一种自组织结构,有膜或无膜,能够浓缩生物分子并将其与外部环境隔离。它是活细胞的假设性前体,位于前生命化学与生物学之间的边界。Jack Szostak(2009年诺贝尔奖)的工作表明,脂肪酸囊泡可以封装RNA,形成区室化和信息结合的系统。
LUCA是什么时候出现的?
2024年的一项研究(Moody et al., Nature Ecology & Evolution)估计,所有地球生命的最后普遍共同祖先LUCA生活在大约42亿年前。根据这一重建,它是一种原核生物级别的厌氧生物,拥有约275万碱基对的基因组,已经融入微生物生态系统。
生命是二元属性吗?
不是。生命表现为一种涌现的和渐进的属性,而不是二元开关。在惰性物质和活细胞之间延伸着一个系统连续体:自组织矿物结构、凝聚层、催化网络、原细胞。每个层次都增加了一个新功能(催化、区室化、信息),但没有跨越明确和确定的边界。
为什么惰性与生命之间的边界仍然模糊?
因为生命源于渐进过渡而不是突然跳跃。化学自组织过程是连续的:随着复杂性的增加,新属性出现(复制、选择、记忆)。没有任何单一分子标志着生命的阈值。这个灰色地带也解释了为什么生物学家、化学家、物理学家和计算机科学家提出不同的生命定义。
生命必然存在于宇宙的其他地方吗?
目前还没有任何东西可以断言这一点。地球生命已被证明是稳健的,能够殖民极端环境,这拓宽了已知宜居环境的范围。欧罗巴快帆任务(NASA,2024年发射)探索木星的卫星欧罗巴,其地下海洋可能拥有有利于生命的条件。但在系外行星上尚未检测到共识确认的生物特征。因此,生命的普遍性仍然是一个诱人但未被证明的假设。
 从第零定律到生成式AI:阿西莫夫的法则受到拷问
 复杂社会如何诞生与消亡?
 面对人工智能的大脑:一个被数据洪流淹没的器官的编年史
 AI学会了思考:人工意识会学会存在吗?
 未来的执念:当预测塑造生命
 下一个冰河时期,世界上哪些地区仍适合居住?
 快速进化:21世纪达尔文式的惊人发现
 致命失衡:无限小的潜藏力量
 演化的伟大过滤器:费米悖论的关键
 最后一次冰川冲击:新仙女木期及其对史前社会的影响
 向日葵为何朝向太阳?拉格朗日量给出的答案
 2026年世界人口:各大洲人口趋势
 生命为何源于失衡,又死于热力学平衡
 电磁波谱与视觉:我们的眼睛如何感知地球
 自我与非我:身份认同的一种简化物理解读
 分子钟:从随机突变到时间测量
 最小细胞:不可避免的涌现
 白沙脚印:美洲最早的人类足迹
 古人类:出现、扩张与灭绝
 生育率下降:人口灾难还是自然演化?
 自然选择 vs 偶然性:为什么进化不是抽奖?
 如果生命起源于地球呢?泛种论理论的一场革命
 将颠覆世界的重大分岔:生存还是崩溃?
 原始化学:最初的有机分子源自何处?
 一氧化碳与二氧化碳:两种气体,两种风险,两种生物机制
 自发同步:从物理到生命的普遍现象
 时间挑战:如何形象化十亿年?
 生命涌现的三个基本要素
 为什么90万年前人属差点灭绝?
 生命涌现的第一步
 影子生物圈
 人类中心主义的衰落:当宇宙使我们的重要性相对化
 鲎,一种活化石!
 地球上生命的起源:泛种论
 地球上生命的起源:白烟囱理论
 为什么是37摄氏度?
 我们在宇宙中孤独吗?科学与推测之间
 冰层中的生命痕迹:史前猛犸象的出现
 新仙女木期:消灭巨型动物的小冰期
 两大冰期:在冰冻地球的海洋中生存
 动物截肢后的再生:组织的再生长
 生命的极限:墨菲斯托,地狱深渊之虫
 太空中发现固体巴基球
 人类行走:人科动物双足行走的起源
 卡拉博:人类演化的一扇窗口
 熵:时间是什么?
 从非生命到生命的过渡
 复杂性的宏大叙事:从基本粒子到第一批生物
 营冢鸟利用火山热
 阿尔迪皮特库斯:440万年前的埃塞俄比亚人科动物
 自然选择:桦尺蠖
 奥陶纪:珊瑚、三叶虫和笔石的时代
 液态水,不仅是溶剂,更是化学反应的催化剂
 尼安德特人:人类失落的表亲
 ASIMO:第一个类人机器人
 哪些条件促成了生命的出现?
 费米悖论与柏拉图洞穴:我们孤独还是盲目?
 水熊虫:挑战生物学法则的坚不可摧的生物
 图迈:已知最古老的人科动物之一
 生命之树:数十亿灭绝物种与一个共同祖先群体
 深渊中的生命:生物的极端适应
 蓝藻与氧气危机:一场原始的生态灾难
 从物质到生命:生物涌现的模糊边界
 世界上最小的青蛙:微型脊椎动物的生理秘密
 小冰期的解释
 生命之光:月球揭示的生物印记
 活光:生物发光的炫目秘密
 超越感官,伟大的科学革命
 原始汤:地球生命的化学摇篮
 世界人口:从十亿人到人口饱和
 生态与崩溃:复活节岛的案例
 分形:普遍的自组织结构