


人類の歩行:ヒト科における二足歩行の起源
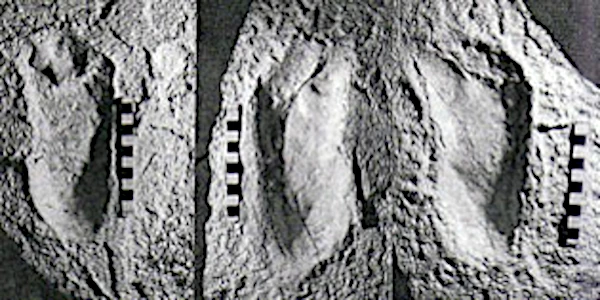
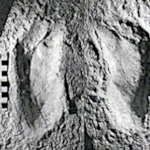
アウストラロピテクス・アファレンシス種に帰属されるこれらの貴重な足跡は、360万年前にタンザニアの火山灰に「刻まれ」ました。これらの足跡は、ヒト科における二足歩行の最も古い直接的な証拠です。
画像出典:人類進化に関する公的科学文書領域。
科学的要約
Astronooの記事は、ヒト科における二足歩行の起源と進化をたどります。主要な説明理論(サバンナ説、手の解放、道具、しゃがみ食事、水棲説)を提示し、その限界を論じます。オロリン・ツゲネンシス、サヘラントロプス・チャデンシス、アウストラロピテクス・アファレンシスの化石、特にラエトリの足跡は、古代の直立歩行を文書化していますが、最も古い遺骸の解釈は依然として議論の的です。この記事はまた、ダヌビウス・グッゲンモシを紹介します。この中新世の大型類人猿の解剖学は、二足歩行の可能な樹上起源に光を当てます。生態学的、行動的、解剖学的制約の間でのこの適応の多因子的性質を強調し、樹上垂直性を中心とした総合を提案します。
二足歩行とは何か、なぜヒト科に現れたのか?
この記事は、二足歩行、すなわち二本の後肢による移動と、ヒト科におけるその出現に捧げられています。しかし、二足歩行とは何か、なぜヒト科に現れたのか?その答えは、長い進化的移行にあり、化石と足跡がその直接的な証拠を構成しています。二足歩行は哺乳類では稀な特徴ですが、ヒト科では支配的になります。タンザニアのラエトリでアウストラロピテクス・アファレンシスに帰属される最も古く、最も曖昧でない痕跡は、360万年前のものです。より古い化石証拠、例えばサヘラントロプス・チャデンシス(約700万年前)やオロリン・ツゲネンシス(約600万年前)のものは、はるかに古い直立姿勢を示唆していますが、その解釈は古人類学者の間で依然として議論されています。いくつかの仮説が二足歩行の起源を説明しようとしています:サバンナ説、手の解放、道具の使用、しゃがみ食事、または水棲説。古環境データは開けた環境よりも森林環境を示唆しているため、どれも完全に満足のいくものではありません。複数の選択圧(生態学的、行動的、食事的)が共同で二足歩行を促進した可能性が高いです。これは手の解放、食事の拡大、道具の使用を可能にすると同時に、生体力学的制約を課しました。これは人類史における環境、行動、解剖学の間の深い相互作用を例示しています。
こちらもおすすめ
宇宙の探検をさらに深めるためのテーマをご紹介します:
進化的背景と二足歩行の出現
哺乳類における稀な移動様式
二足歩行、すなわち二本の後肢による移動は、哺乳類では稀な特徴です。ほとんどの陸生哺乳類は三畳紀(−2億5100万〜−1億9960万年前)以来四足歩行ですが、いくつかのグループは二足歩行の移動を発達させました。ヒト科では、それが支配的になります。
最初の二足歩行ヒト科
最初の霊長類は約7000万年前に出現しました。人類系統の最も古い推定代表であるサヘラントロプス・チャデンシス(約700万年前)は、チャドで発見され、後頭孔の位置が直立姿勢を示唆する頭蓋骨で知られています。同じ遺跡に帰属される四肢骨(大腿骨と尺骨)は、2022年に習慣的な二足歩行の証拠として解釈されましたが、この解釈は依然として激しく議論されています(以下の専用章を参照)。ケニアのオロリン・ツゲネンシス(約600万年前)は、その形態が直立歩行と両立する大腿骨を持っています。その後、アウストラロピテクス・アファレンシス(約385万〜295万年前)は、ラエトリ(タンザニア)の化石足跡によって確認される、よく確立された二足歩行の特徴を示しています。これらの足跡は、現代人に近い蹠行性の歩行を示しています。
他の動物における二足歩行
いくつかのグループに共有される能力
二足歩行は人類だけのものではありません。鳥類(獣脚類の子孫)、一部の哺乳類(ミーアキャット、カンガルー、クマ)、そして多くの霊長類(チンパンジー、ボノボなど)が一時的に採用することができます。ヒト科では、それが恒久的になります。
サヘラントロプス・チャデンシス:700万年前の二足歩行?
科学的論争の中心にある大腿骨
2001年にチャドのジュラブ砂漠で発見されたサヘラントロプス・チャデンシスの頭蓋骨は、「トゥーマイ」と呼ばれ、脊椎が挿入される後頭孔の前方位置に基づいて、2002年に二足歩行のヒト族に属するものとして発表されました。同じ遺跡で発見されたが、頭蓋骨と正式に関連付けられていない部分的な大腿骨と2本の尺骨(前腕骨)は、長い間議論の外にありました。2020年、この大腿骨の最初の研究は、習慣的な二足歩行と両立しない形態であると結論付けました。2022年、CNRSとポワティエ大学のチームはNatureに大腿骨と尺骨の詳細な分析を発表し、逆に、大腿骨が二足歩行への選択の特徴をいくつか示しつつ、樹上生活の指標を保持していると結論付けました。
疑問視される解釈
この解釈はその後疑問視されています。2024年、2020年の研究の著者の一部を含むチームがJournal of Human Evolutionに批判的な回答を発表し、大腿骨はアウストラロピテクスのような習慣的な陸生二足歩行者に独占的に関連する特徴を何ら示していないと推定しました。2026年初頭にScience Advancesに発表された新しい比較再分析は、同様の結論に達し、遺骸の非常に断片的な性質を強調しています(大腿骨の骨幹のみが保存され、通常最も情報量の多い近位端と遠位端がない)。したがって、議論は依然として未解決です:サヘラントロプスは習慣的ではなく偶発的な二足歩行者であった可能性があり、またはその二足歩行者としての地位は化石の現状では証明できないままである可能性があります。
未解決の議論と方法論的困難
注:この事例は、古人類学における繰り返し生じる困難を例示しています:稀で不完全な化石は、同等に資格のあるチームによって相反する解釈の対象となることがあり、コンセンサスがすぐに形成されることはありません。
ダヌビウス・グッゲンモシ:懸垂と直立歩行の間の中新世大型類人猿
「伸展肢クライミング」
2019年にバイエルン(ドイツ)のハンマーシュミーデ遺跡で発見された遺骸から記載されたダヌビウス・グッゲンモシは、約1162万年前に遡る化石大型類人猿です。サヘラントロプスやオロリンとは異なり、椎骨、四肢骨、指骨を含む比較的完全な骨格で知られています。その解剖学は、二足歩行者に匹敵する伸展した股関節と膝関節を、懸垂性大型類人猿に典型的な細長い前肢と組み合わせています。研究者たちはこの新規の移動様式に対してextended limb clambering(「伸展肢クライミング」)という用語を提案しました:ダヌビウスはおそらく、腕で上枝につかまりながら、枝の上を直立して歩くことによって移動していました。
懸垂と二足歩行の間の共通祖先?
この発見は、大型類人猿と人類の最後の共通祖先が、厳密な四足歩行者でも純粋な懸垂性動物でもなく、樹上生活から受け継いだ直立した胴体を持ち、両方の様式を組み合わせることができる動物であった可能性を示唆しています。この仮説は依然として議論の的です:2020年には早くも、他の古人類学者が解釈の特定の要素(股関節の力学、遠位脛骨の方向、腰椎の機能的長さ)に異議を唱え、ダヌビウスの遺骸は豊富ではあるが断片的でもあることを想起させました。
樹上垂直性仮説への貢献
いずれにせよ、ダヌビウスは、この記事の後半で展開される樹上垂直性仮説に具体的な化石的論拠を提供しています。
人類の二足歩行の起源に関する主要な理論
主な説明仮説
いくつかの仮説がヒト科における二足歩行の起源を説明しようとしています:
- サバンナ説:直立歩行は背の高い草の上を見て、開けた環境で移動することを可能にします。しかし、古環境データは、アウストラロピテクスがむしろ森林環境で進化したことを示しています。
- 手の解放:直立することで、食物を運ぶために腕が自由になります。実験は、チンパンジーが物を運ぶときに二足歩行が著しく増加することを示しています。
- 道具の使用:前者に近く、この理論は自由な手が道具を操作するのに役立ち、姿勢と器用さの共進化を刺激したことを示唆しています。
- しゃがみ食事:Kingdonによって提唱され、垂直姿勢を促進する樹上または地上での食事を想起させます。
- 水棲説:Niemitzは半水棲起源を提唱し、二足歩行が浅い水域での移動に有利であったとしています。人類の体温調節がこの仮説を強化するでしょう。
現在の仮説の限界
推測的なシナリオ
これらすべての理論は推測の域を出ません。化石は稀で部分的であり、進化的シナリオの再構築を困難にしています。これは、上記で提示されたサヘラントロプスとダヌビウスをめぐる議論によって例証されています。複数の選択圧 – 生態学的、行動的、食事的 – が共同で二足歩行を促進した可能性が高いです。
統合に向けて:樹上垂直性
樹上の遺産
垂直姿勢は樹上性のサルで頻繁に見られ、登ったりぶら下がったりするのに役立ちます。ヒト科の共通祖先が地上に移行する際にこの垂直性を保持した可能性は十分にあります。人類の二足歩行は、樹上適応の地上的延長であったでしょう:これはまさに、ダヌビウス・グッゲンモシの解剖学が示唆するものであり、その直立した胴体と懸垂性前肢の関連は、この移行の妥当なモデルを提供しています。
二足歩行:多因子プロセス
複雑な進化的移行
人類の二足歩行は、緩やかな進化的移行の結果です。それは手の解放、食事の拡大、道具の使用を可能にしました…が、生体力学的制約も課しています。この複雑な進化は、人類史における環境、行動、解剖学の間の深い相互作用を例示しています。
参考文献
- Smithsonian Institution - Australopithecus afarensis (新しいウィンドウ)
- Encyclopædia Britannica - Bipedalism (新しいウィンドウ)
- Daver, G., Guy, F., Mackaye, H.T. et al. (2022). Postcranial evidence of late Miocene hominin bipedalism in Chad. Nature, 609, 94–100. https://doi.org/10.1038/s41586-022-04901-z (新しいウィンドウ)
- Cazenave, M., Pina, M., Hammond, A.S. et al. (2024/2025). Postcranial evidence does not support habitual bipedalism in Sahelanthropus tchadensis: A reply to Daver et al. (2022). Journal of Human Evolution, 198, 103557. https://doi.org/10.1016/j.jhevol.2024.103557 (新しいウィンドウ)
- Williams, S.A., Wang, X., Araiza, I. et al. (2026). Earliest evidence of hominin bipedalism in Sahelanthropus tchadensis. Science Advances. https://doi.org/10.1126/sciadv.adv0130 (新しいウィンドウ)
- Böhme, M., Spassov, N., Fuss, J. et al. (2019). A new Miocene ape and locomotion in the ancestor of great apes and humans. Nature, 575, 489–493. https://doi.org/10.1038/s41586-019-1731-0 (新しいウィンドウ)
FAQ:二足歩行について知っておくべきこと
二足歩行とは何ですか?
二足歩行とは、二本の後肢による移動です。ヒト科では、それが恒久的になり、他の用途のために手を解放しました。四本の肢による移動である四足歩行とは区別されます。
ヒト科に二足歩行はいつ現れましたか?
ヒト科における二足歩行の最も古い直接的で曖昧でない痕跡は、タンザニアのラエトリの足跡で、360万年前に遡り、アウストラロピテクス・アファレンシスに帰属されます。より古い化石、例えばサヘラントロプス・チャデンシス(約700万年前)やオロリン・ツゲネンシス(約600万年前)のものは、中新世後期にはすでに直立歩行を示唆していますが、この解釈は最も古い遺骸については依然として議論されています。
サヘラントロプス・チャデンシスは本当に二足歩行でしたか?
これは今日、起源の古人類学で最も議論されている問題です。2022年の研究は、その大腿骨が二足歩行の特徴を持っていると結論付けました。2024年と2026年に発表された再分析は、習慣的な陸生二足歩行者に独占的と判断される特徴がないとして、この解釈に異議を唱えています。骨の断片的な性質により、現在のところ決着をつけることはできません。
二足歩行の起源に関する主な理論は何ですか?
いくつかの理論が共存しています:サバンナ説、手の解放、道具の使用、しゃがみ食事、水棲説。どれも完全に満足のいくものではなく、複数の要因が共同で作用した可能性が高いです。
なぜ二足歩行は多因子適応と考えられているのですか?
それは複数の選択圧から生じているからです:生態学的、行動的、食事的。稀で部分的な化石は単一のシナリオの再構築を妨げ、複雑で漸進的な起源を示唆しています。
二足歩行の利点と欠点は何ですか?
二足歩行は手を解放し、物を運び、道具を使い、食事を広げることを可能にします。一方で、特に骨盤、脊椎、下肢に生体力学的制約を課します。
二足歩行は人類に固有のものですか?
いいえ。多くの動物が一時的または恒久的に二足歩行です:鳥類、カンガルー、ミーアキャット、一部の霊長類。ヒト科では、二足歩行が支配的で恒久的な移動様式になりました。
 第零法則から生成AIへ:問われるアシモフの法則
 複雑な社会はどのように誕生し、消滅するのか?
 AIに直面する脳:データ洪水に圧倒される器官のクロニクル
 AIは考えることを学んだ:人工意識は存在することを学ぶのか?
 未来への執着:予測が生命を形作るとき
 次期氷河期にどの地域が居住可能か?
 21世紀のダーウィンの雷鳴:加速する進化
 致命的不均衡:極小の物質の予想外の力
 進化の大フィルター:フェルミのパラドックスの鍵
 なぜヒマワリは太陽の方を向くのか?ラグランジアンによる解答
 世界人口2026:大陸別の人口動向
 なぜ生命は不均衡から生まれ、熱力学的平衡で消滅するのか
 電磁スペクトルと視覚:私たちの目が捉える地球の姿
 自己と非自己:物理法則から見たアイデンティティの簡単な解説
 分子時計:突然変異の偶然性から時間の測定へ
 最小細胞:避けられない出現
 ホワイトサンズの足跡:アメリカ大陸の最初の一歩
 ホミニン:出現、拡散、絶滅
 出生率の低下:人口災害か自然な進化か?
 自然選択 vs 偶然:なぜ進化は宝くじではないのか?
 生命が地球から始まったら?パンスペルミア理論の革命
 世界を激変させる大分岐:生存か崩壊か?
 原始化学:最初の有機分子はどこで生まれたのか?
 COとCO₂:2つのガス、2つのリスク、2つの生物学的メカニズム
 自発的同期:物理学から生命までの普遍的現象
 時間的課題:10億年をどのように視覚化するか?
 生命の誕生に不可欠な3つの要素
 なぜホモ属は90万年前に絶滅の危機に瀕したのか?
 影の生物圏
 人間中心主義の衰退:宇宙が私たちの重要性を相対化するとき
 カブトガニ:生きている化石!
 生命の起源:パンスペルミア理論
 生命の起源:ホワイトスモーカー理論
 なぜ37度セルシウスなのか?
 私たちは宇宙で孤独なのか?科学と推測の間で
 氷の中の生命の痕跡:先史時代のマムートの出現
 ドリアス期:メガファウナを絶滅させたミニ氷河期
 2つの大氷河期:凍った地球の海で生き残る
 動物の切断後の再生:器官の再生
 生命の果て:地底のメフィスト、深淵の虫
 宇宙で固体フラーレンが発見される
 人間の歩行:原人の二足歩行の起源
 カラボ:人間進化の窓
 エントロピー:時間とは何か?
 無生物から生命への移行
 複雑さの物語:素粒子から最初の生物まで
 メガポード:火山の熱を利用する
 アルディピテクス:440万年前のエチオピアの原人
 自然選択:カバマダラの例
 オルドビス紀:サンゴ、三葉虫、放散虫の時代
 液体の水:単なる溶媒以上、化学反応の促進剤
 ネアンデルタール人:人類の失われたいとこ
 ASIMO:最初のヒューマノイド
 是什么条件允许了生命的出现?
 フェルミのパラドックスとプラトンの洞窟:私たちは孤独か、それとも盲目か?
 クマムシ:生物学の法則に挑戦する不死身の生物
 トゥーマイ:最古の原人の一つ
 生命の樹:数十億の絶滅種と単一の祖先コミュニティ
 深海の生命:極限の適応を遂げた生物
 シアノバクテリアと酸素危機:原始的な環境災害
 物質から生命へ:生物学的出現の曖昧な境界
 世界最小のカエル:微小脊椎動物の生理的秘密
 小氷期の説明
 生命の光:月が明かすバイオシグネチャー
 生きている光:生物発光の驚異的な秘密
 感覚を超えて:科学の大革命
 原始のスープ:地球生命の化学的揺籃
 世界人口:10億人から人口飽和へ
 生態学と崩壊:イースター島の事例
 フラクタル:自己組織化された普遍的構造