

最小細胞:避けられない創発
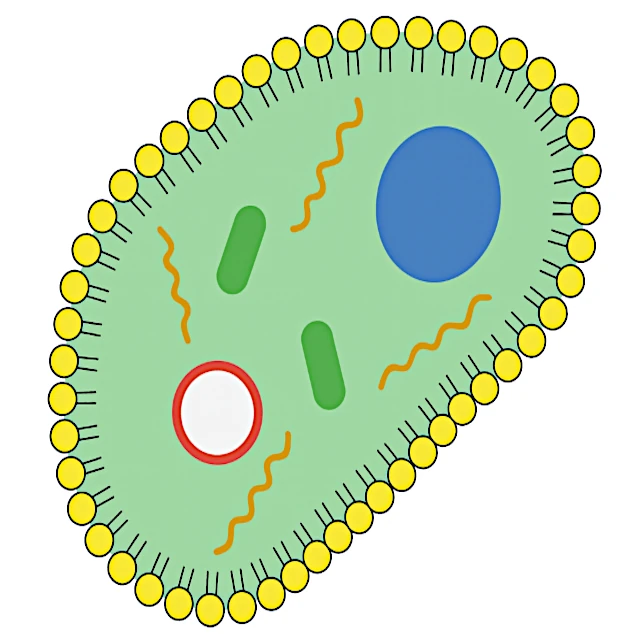
静電的自己組織化によって形成された原始細胞の表現。 この最小細胞は、脂質膜(黄色の親水性頭部と黒色の疎水性尾部)、原始核(青)、RNA分子(オレンジ)、アミノ酸を組み立てるリボソーム(緑)、およびタンパク質を輸送する膜(赤)を持つ内部小胞(白)を示しています。
画像ソース:astronoo.com (新しいウィンドウ) — AI生成画像、パブリックドメイン。
科学的要約
この記事は、生命の創発をエネルギー流にさらされた物質の相転移として理解することを提案しています。階層的プロセスは、原子から有機分子へ、そして構造的相補性による複製可能な高分子(RNA)へと導きます。同時に、リン脂質は自己組織化して膜を形成します。最小原始細胞は、生命の3つの本質的特徴である代謝、伝達可能な情報(RNA)、区画化(膜)を統合し、ダーウィン的進化を可能にします。
不活性分子から最小細胞はどのようにして自発的に創発するのでしょうか?
生命は、特定の物理化学的条件が満たされたときに創発する、エネルギー流にさらされた物質の相転移として理解できます。プロセスは階層に従います。原子が有機分子(アミノ酸、糖、脂質、RNA塩基)に集まり、それらが構造的相補性(静電引力、整列、対合、分離)によって複製可能な高分子(RNA)に組織化されます。これらの分子は非平衡環境で競合し、複製速度によって選択されます。並行して、リン脂質は自発的に膜(脂質二重層)に自己組織化して区画を形成します。最小原始細胞は、生命の3つの本質的特徴である代謝、伝達可能な情報(RNA)、区画化(膜)を統合します。ダーウィン的進化はその後完全に機能することができます。
こちらもおすすめ
宇宙の探検をさらに深めるためのテーマをご紹介します:
生命の起源の問題は、古来より人類を魅了してきました
生命が偶発性の結果でも目的論の結果でもなく、エネルギー流にさらされた物質の相転移の表現だったとしたらどうでしょうか?
不活性分子から、約38億年前に地球で生命はどのようにして創発したのでしょうか? この問いは、最小細胞 (自律的な複製が可能な最小の生物学的実体)の原理を検討することで、現代的な視点からアプローチできます。 環境変動に対して調節された内部状態を維持し、自律的に複製することができる最も基本的な組織形態は何かを決定することが問題です。
現代の細胞:驚くべき多様性と複雑性
現代の細胞は、すべての生物(細菌、古細菌、真核生物)の基本単位を構成します。 しかし、最も単純な細胞でさえ、すでに驚くべき複雑性を持つ分子の大聖堂です。
人間では、体には約37兆個の細胞が含まれ、200以上の異なる細胞タイプに分かれていると推定されています。 各細胞タイプは、その生物学的機能に適応した特定の形態学的および生化学的特性を持っています。
深い時間と環境の多様性の役割
原始地球は巨大な自然実験を提供しました:数兆の化学反応が同時に進行し、数億年にわたって続きました。 すべての暖かい池、すべての熱水割れ目、すべての多孔質鉱物や粘土粒子は、有機分子が集まるミニチュア実験室を形成しました。 長期間にわたって自然のサイクルによって絶えず撹拌され、これらの分子は徐々に生命の構成要素であるアミノ酸、糖、脂質、RNA塩基へとつながる化学経路をたどりました。
注:
生命の起源に関する議論は依然として活発ですが、一点ではコンセンサスがあります:タンパク質を形成するアミノ酸は、すべての生物にとって必須の分子構成要素です。 さらに、それらの自然形成は宇宙で可能であり、隕石の中で発見されています。 これは、アミノ酸がおそらく原始地球上で利用可能であったことを示唆しています。
原子から高分子へ
絶え間ない運動
原子は、熱運動 (温度に関連する平均運動エネルギー)のために絶えず運動しており、分子内でわずかな変位や振動を引き起こします。 水素結合やファンデルワールス相互作用(引力または反発力)などの弱い化学結合は、原始的な炭素ベースの分子内で原子をまとめています。 炭素は、4つの安定した共有結合を持つため、分子集合体を構築するための完璧な元素です。
無限の多様性
分子のランダムな振動は、小さな電磁石のように振る舞い、化学構造が同時に異なる空間的コンフォメーション (空間内の原子の三次元配置)を探索することを可能にします。 新しい分子形状が継続的に作成され、それによって安定な配置の可能性が高まります。 この多様性は、実質的に無限の分子形状のリザーバーを構成し、その中で電磁気的に安定な構造のみが自然淘汰にさらされるのに十分な長さ存続します。
高分子から複製可能な高分子へ
自己複製の物理的メカニズム
特定の分子配置は、単純な原理である構造的相補性に基づいた自然な自己複製を可能にします。
相補鎖の形成
高分子(3D形状に折りたたまれた一本鎖)は、その形状と電荷が周囲に存在する特定の遊離化学元素を正確に引き付ける型として機能します。 これらの遊離元素は、化学的適合性に従って鎖に沿って整列し、別個の第二の相補鎖(写真のネガのようなもの)を形成します。 これにより、周囲の構成要素から断片的に組み立てられた、対合した二本鎖構造が得られます。
サイクルの切断と継続
水素結合で結合された二本鎖は、媒体の熱運動の影響で最終的に自然に分離します。 このエネルギー収支は、出会いと分離を可能にするのに十分な運動が必要ですが、組み立てられた構造(暖かい池、熱水噴出孔など)の完全性を保つために過剰であってはならないため、重要です。 この相補的高分子は、それ自体が初期配列を再作成するための型として機能することができます。
複製の自発的創発
この純粋に物理化学的なメカニズム(引力→整列→対合→分離→初期配列の復元)を通じて、自己複製可能なRNA高分子がどのようにして原始地球上で自発的に創発し得たかを理解することが可能になります。
複製可能な高分子から最小細胞へ
複製分子の競争と選択
システムは自己触媒的 (自身の複製を加速することができる)になります:一部のRNA分子は、遊離ヌクレオチド(A、G、C、U)をより効率的にリクルートすることで、他の分子よりも速く複製します。 小さなエラーや変異は、異なるコピー速度と安定性を持つ新しい形態を生み出します。 最も速くて安定した分子が増殖し、効率の悪いものは消失します。 この選択は自然であり、非平衡系(すなわち、撹拌され、一定の物質流によって供給される系)における化学速度論の法則から直接生じます。
膜区画の自発的形成
複製分子から真の細胞への移行には、膜区画 (内部と外部を分離する脂質エンベロープ)の出現が必要です。 生体膜は、リン脂質 (極性親水性頭部と2つの疎水性脂肪酸鎖からなる脂質)、すなわち水性媒体中で自発的に二重層に組織化する両親媒性 (親水性部分と疎水性部分の両方を持つ分子)分子で構成されています。 この自己組織化は自然です:熱力学的に有利であり、外部からの介入なしに発生します。ちょうど石鹸の泡が水面に自発的に形成されるように。
最小原始細胞の創発
脂質膜によって保護され、自己複製可能なRNA分子を含む原始細胞は、最小の生物の本質的特徴を持っています。 それは代謝(自身の内部構成要素の生産)、複製能力(細胞分裂)、伝達可能な情報担体(RNA)を持っています。 この段階から、ダーウィン的進化が完全に機能し、その環境で最も効率的に成長し分裂する原始細胞を優先することができます。
参考文献
- Nature Chemistry - Self-reproduction of supramolecular giant vesicles combined with DNA amplification (新しいウィンドウ)
- NCBI PMC - The RNA World Hypothesis and the Origin of Life (新しいウィンドウ)
- Science - Design and synthesis of a minimal bacterial genome (新しいウィンドウ)
- MDPI Life - Self-Assembly of Amphiphiles and Prebiotic Compartmentalization (新しいウィンドウ)
- PNAS - Darwinian evolution and growth of primitive protocells (新しいウィンドウ)
- Nature Reviews Microbiology - The origin and early evolution of cellular life (新しいウィンドウ)
- 国立自然史博物館 - 生命の起源と進化 (新しいウィンドウ)
- Astronoo.com - 元の記事のソース (新しいウィンドウ)
よくある質問:最小細胞と生命の創発に関するすべて
「最小細胞」とは何であり、現代の細胞とどう違うのですか?
最小細胞は、調節された内部状態を維持し、自律的に複製することができる最も基本的な組織形態を定義する理論的概念です。代謝、伝達可能な情報(RNA)、区画(膜)の3つの本質的特徴を統合します。現代の細胞は、最も単純なものでさえ、何千もの遺伝子と洗練された制御システムを持つ「分子の大聖堂」であり、原始細胞の単純さとはかけ離れています。
RNA高分子はどのようにして原始地球上で自発的に複製できたのですか?
自発的複製は構造的相補性の原理に基づいています。RNA高分子(一本鎖)は型として機能します:その形状と電荷は、化学的適合性によって整列する遊離ヌクレオチド(A、G、C、U)を正確に引き付けます。第二の相補鎖が形成され、その後、二本鎖は熱運動の影響で自然に分離します。各鎖はその後、初期配列を再作成するための型として機能することができます。このサイクル(引力→整列→対合→分離)は純粋に物理化学的メカニズムです。
膜の形成が生命細胞への重要なステップであるのはなぜですか?
膜は区画化、すなわち外部媒体から区別された保護された内部環境の創出を可能にします。膜がなければ、複製分子は分散し、試薬の濃縮が不可能になります。リン脂質は両親媒性分子であり、水性媒体中で自発的に二重層に自己組織化し、透過性バリアを形成します。複製可能なRNA分子を含む膜によって保護された原始細胞は、生命の3つの本質的特徴を持ち、ダーウィン的進化が完全に機能することを可能にします。
 未来への執着:予測が生命を形作るとき
 次期氷河期にどの地域が居住可能か?
 21世紀のダーウィンの雷鳴:加速する進化
 致命的不均衡:極小の物質の予想外の力
 進化の大フィルター:フェルミのパラドックスの鍵
 なぜヒマワリは太陽の方を向くのか?ラグランジアンによる解答
 世界人口2026:大陸別の人口動向
 なぜ生命は不均衡から生まれ、熱力学的平衡で消滅するのか
 電磁スペクトルと視覚:私たちの目が捉える地球の姿
 自己と非自己:物理法則から見たアイデンティティの簡単な解説
 分子時計:突然変異の偶然性から時間の測定へ
 最小細胞:避けられない出現
 ホワイトサンズの足跡:アメリカ大陸の最初の一歩
 ホミニン:出現、拡散、絶滅
 文明の大崩壊:重要な時期と原因
 出生率の低下:人口災害か自然な進化か?
 自然選択 vs 偶然:なぜ進化は宝くじではないのか?
 生命が地球から始まったら?パンスペルミア理論の革命
 世界を激変させる大分岐:生存か崩壊か?
 原始化学:最初の有機分子はどこで生まれたのか?
 COとCO₂:2つのガス、2つのリスク、2つの生物学的メカニズム
 自発的同期:物理学から生命までの普遍的現象
 時間的課題:10億年をどのように視覚化するか?
 生命の誕生に不可欠な3つの要素
 なぜホモ属は90万年前に絶滅の危機に瀕したのか?
 影の生物圏
 人間中心主義の衰退
 カブトガニ:生きている化石!
 宇宙における生命の存在:バイオシグネチャー
 人工知能の課題と脅威
 生命の起源:パンスペルミア理論
 生命の起源:ホワイトスモーカー理論
 なぜ37度セルシウスなのか?
 私たちは宇宙で孤独なのか?科学と推測の間で
 氷の中の生命の痕跡:先史時代のマムートの出現
 ドリアス期:メガファウナを絶滅させたミニ氷河期
 2つの大氷河期:凍った地球の海で生き残る
 動物の切断後の再生:器官の再生
 生命の果て:地底のメフィスト、深淵の虫
 宇宙で固体フラーレンが発見される
 人間の歩行:原人の二足歩行の起源
 カラボ:人間進化の窓
 エントロピー:時間とは何か?
 無生物から生命への移行
 複雑さの物語:素粒子から最初の生物まで
 メガポード:火山の熱を利用する
 アルディピテクス:440万年前のエチオピアの原人
 自然選択:カバマダラの例
 オルドビス紀:サンゴ、三葉虫、放散虫の時代
 液体の水:単なる溶媒以上、化学反応の促進剤
 ネアンデルタール人:人類の失われたいとこ
 ASIMO:最初のヒューマノイド
 生命の誕生を可能にした条件は何か?
 フェルミのパラドックスとプラトンの洞窟:私たちは孤独か、それとも盲目か?
 クマムシ:生物学の法則に挑戦する不死身の生物
 トゥーマイ:最古の原人の一つ
 生命の樹:数十億の絶滅種と単一の祖先コミュニティ
 深海の生命:極限の適応を遂げた生物
 シアノバクテリアと酸素危機:原始的な環境災害
 物質から生命へ:生物学的出現の曖昧な境界
 世界最小のカエル:微小脊椎動物の生理的秘密
 小氷期の説明
 生命の光:月が明かすバイオシグネチャー
 生きている光:生物発光の驚異的な秘密
 感覚を超えて:科学の大革命
 原始のスープ:地球生命の化学的揺籃
 世界人口:10億人から人口飽和へ
 生態学と崩壊:イースター島の事例
 フラクタル:自己組織化された普遍的構造