


物質から生命へ:生物学的創発の曖昧な境界
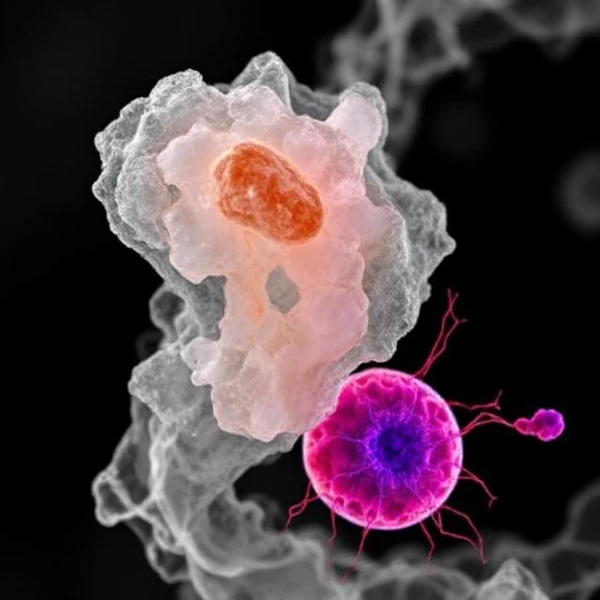
電子顕微鏡による形態学的展望:フラクタルに触発された鉱物構造と活動的な生きた細胞との印象的な対比。地質学的バイオミメティクスと細胞機構の間の視覚的な混同を浮き彫りにする。
画像出典:astronoo.com(新しいウィンドウ)、AI生成画像、パブリックドメイン。
科学的要約
Astronooの記事は、不活性物質と生命の境界を検討し、生命を定義する物理化学的基準を分析する。自己組織化された鉱物構造、プリオン(誤って折り畳まれたタンパク質)、さらにはウイルスでさえ、生命の閾値を明確に超えることはない一方、コアセルベート(水性微小液滴)とRNAワールドは中間領域を占めることを示している。この記事は、細胞を単なる化学システムと区別する生物学的情報と進化的記憶の中心的な役割を強調している。また、プレバイオティクス化学と生物学の橋渡しとしてのプロトセル、RNAワールドからDNA-タンパク質ワールドへの移行、そして最後の普遍共通祖先(LUCA)を探求する。最後に、生命の堅牢性と宇宙の他の場所での出現の可能性を問いかける。
鉱物と細胞の間で、実際に何が生きているのか?
この記事は、不活性物質と生命の境界に捧げられており、現代生物学の最もデリケートな問題の一つである。生きた細胞は間違いなく生きたシステムである。しかし、ウイルス、プリオン、または自己組織化された成長が可能な特定の結晶はどうだろうか?答えは、化学と生物学、熱力学と情報の間にあるグレーゾーンにある。生命の出現を記す「魔法の分子」は存在しない。生命は物質の漸進的な複雑化から生じ、そこでは自己組織化、触媒、区画化、情報処理が織り交ざっている。生命は、代謝し、繁殖し、進化し、過去の記憶を保持することができる情報化された物質として定義される。この移行を理解することは、盲目的な化学がどのようにして自分自身を生きていると認識できる実体を生み出したかを理解することである。この記事はまた、地球上の生命の粘り強さと、宇宙の他の場所での出現の可能性も探求する。
こちらもおすすめ
宇宙の探検をさらに深めるためのテーマをご紹介します:
不活性と生命の間の曖昧な閾値
物質の漸進的な複雑化
生命は物質の自明な特性ではない。それは突然現れるのではなく、化学構造の漸進的な複雑化の果てに現れるようである。生命の起源は、化学と生物学、熱力学と情報の間のグレーゾーンに位置する。
ウイルスから自己組織化された鉱物構造まで
生きた細胞が間違いなく生きたシステムであるならば、ウイルス、プリオン、または生物学的成長を模倣する特定の自己組織化された鉱物構造はどうだろうか?これらのシステムは、成長、繁殖、構造的欠陥の伝達など、生命の特定の特性を持っているが、それらすべてを兼ね備えているわけではない。それらは、不活性と生命の間の境界の漸進的な性質を例示している。
生命の物理化学的定義
単一の定義ではなく、一連の基準
単一の明確な定義ではなく、今日の生物学者は一連の基準を好む。生物は、エネルギーを代謝し、繁殖する能力だけでなく、環境に反応し、進化する能力など、一定数の基本的な特徴を示さなければならない。より正確には、6つの操作的基準が生命を特徴づけることを可能にする:区画化(内部と外部の境界)、代謝(エネルギーと物質の流れ)、伝達可能な情報(ゲノムまたはコピー可能な構造)、変異を伴う複製、ダーウィン的進化(自然選択)、そして熱力学的平衡からの維持である。これらの基準はすべてが最初から存在するわけではなく、段階的に出現した可能性がある。
生命のフロンティアにおける基準の曖昧さ
しかし、これらの基準は生命の境界では依然として曖昧である。例えば、ウイルスは独自の代謝を持たないが、宿主細胞内に入ると繁殖し、進化することができる。ウイルスは一般に生命の境界に置かれる:遺伝情報を持ち、進化するが、複製するために宿主細胞に完全に依存し、自律的な代謝を持たない。逆に、結晶は成長し、複製することができるが、決して生きているわけではない。
熱力学的フロンティア:ありえない秩序
生命、平衡から遠く離れた散逸系
生命は、自由エネルギーを消費し、エントロピーを環境に放出することによって、局所的に秩序を維持する平衡から遠く離れた散逸系である。それは熱力学の第二法則と矛盾しない:その法則を利用している。冷蔵庫が電気を消費して冷たい区画から熱を抽出するように、細胞は熱と廃棄物を外部に放散することによって内部の秩序を維持する。物理学者イリヤ・プリゴジンは、平衡から遠く離れた散逸構造が一般的な現象であり、生命はその特に複雑な現れにすぎないことを示した。
高度にありえない高分子
このダイナミクスは、自己複製が可能な高分子という、高度にありえない化学構造に依存している。この特性がなければ、自己組織化されたシステムは生命の地位を主張できない。生物学的秩序はエントロピーの否定ではなく、その帰結である:生命は、自分自身の秩序を保つために、周囲に無秩序を生み出す機械である。
生命に近い構造の比較
次の表は、生命の境界にあるいくつかの実体を、繁殖能力、代謝、内部組織、生物学的地位に従って比較したものである。
| 実体 | 繁殖 | 代謝 | 組織 | 地位 |
|---|---|---|---|---|
| 自己組織化鉱物構造 | モチーフの付加による成長 | なし | 周期的秩序 | 不活性 |
| プリオン | あり(タンパク質変換) | なし | 病原性タンパク質 | 非生命 |
| コアセルベート | 成長と分裂は可能だが、完全な遺伝性はない | なし | コロイド状微小区画 | 生命の前駆体 |
| プレバイオティクス生命(自己組織化化学システム) | 部分的(化学サイクル) | 部分的(プロト代謝) | 平衡から遠く離れた動的組織 | 生命の限界 |
| RNAワールド | 仮説的(自己複製) | 触媒/プロト代謝の可能性 | RNA触媒のネットワーク | プロト生命 |
| ウイルス | あり(宿主細胞内) | なし | 組織化されたタンパク質構造 | 限界 |
| 生きた細胞 | あり | あり | 複雑、区画化 | 生命 |
中間世界の仮説
真に生きているわけでも、完全に不活性でもないシステム
プレバイオティクス生命やRNAワールドのような現代の仮説は、中間システムの存在を仮定している:真に生きているわけでも、完全に不活性でもない。これらのシステムは、自己複製、進化、あるいは触媒の初歩的な能力を持っていた可能性があり、生きた細胞への相転移への道を開いた。
物質の目覚め:生命の中心にある情報
情報、生命の基本的特性
生命の最も基本的な特徴の一つは、情報を保存、処理、伝達する能力である。しばしばコードに例えられるDNAは、分子であると同時に指示のベクトルでもある。物理的支援(窒素塩基、リン酸、糖)と情報内容(コード配列、調節)の間のこの二重性は生物学に特有であり、不活性物質には存在しない。
アルゴリズム的で進化的な論理
生命はアルゴリズム的論理に基づいている:転写、翻訳、フィードバック制御、細胞内シグナル伝達。これらの操作は、エネルギーや物質を変換するだけでなく、進化的プログラムの継続性も管理する。生命の境界にあるウイルスでさえ、遺伝情報を複製と進化のベクトルとして使用する。
情報化された物質と進化的記憶
生命はしたがって、自己維持と変異を伴う自己複製が可能な情報化された物質として定義できる。秩序が静的で記憶のない結晶とは異なり、生きた細胞は機能をコードするゲノムを持ち、それは変異し、修正され、選択されることができる。生命へのこの情報的アプローチは、生物学、熱力学、計算理論を結びつける。
この意味で、地球上の生命の出現は決定的な移行を示す:盲目的な化学から進化的記憶を備えた化学への移行である。生命はしたがって、反応する物質だけでなく、過去を保存しながら未来に自分自身を投影する物質である。
プロトセル:区画化、エネルギー、情報
脂質小胞:自発的膜
プロトセルは、生体分子を濃縮し、環境から隔離する自己組織化構造である。水中では、脂肪酸などの両親媒性分子が酵素なしで自発的に二重層に集合し、小胞を形成する。これらのプレバイオティクス膜は、プレバイオティクス条件下で合成され、隕石で検出された単純な脂肪酸から出現した可能性がある。
コアセルベート:膜のない区画
コアセルベートは、ペプチドや核酸からなる液-液相分離から生じる液滴である。1929年にオパーリンによって記述され、特定の分子を濃縮し、成長し、機械的に分裂する。完全な遺伝性はないが、化学反応に有利な微小環境を提供する。
鉱物触媒と膜形成
2024年、ニール・デヴァラージのチームは、システインとチオエステルがシリカの存在下で自発的に脂質を形成することを示した。これらの脂質はその後、生化学反応を収容するのに十分安定なプロトセル型小胞に集合する。シリカは鉱物触媒として作用し、鉱物化学から生物学的区画化への妥当な経路を示唆している。
区画と複製分子の結合
区画化だけでは十分ではない:情報を保存し、複製することができる分子、例えばRNAも必要である。ジャック・ショスタクの研究は、脂肪酸小胞がRNAをカプセル化できることを示し、モンモリロナイトが小胞形成を大幅に増加させ、RNA重合を助ける。区画、エネルギー、情報の間のこの結合に、生命の真の閾値があるのかもしれない。
RNAワールドからDNA-タンパク質ワールドへ
リボザイム:触媒するRNA
RNAワールド仮説は、DNAとタンパク質の前に、RNAが情報の担体と触媒の両方として機能していたと提案する。1989年のノーベル化学賞を受賞したリボザイムの発見は、同じ分子が情報を運び、反応を触媒できることを確認した。
リボソーム:RNAワールドの生きた化石
リボソームでは、タンパク質ではなくリボソームRNAがペプチド結合の形成を触媒する。したがって、リボソームは部分的にリボザイムであり、RNAワールドの名残である。タンパク質への移行は漸進的な委任によって行われ、RNAが最も古い機能を保持した。
DNAへの移行
DNAは化学的に安定しているため、遺伝情報の担体としてRNAを置き換えた。より壊れやすいRNAは一時的な中間体として残り、DNAが長期的な記憶を保証する。この役割の分離—貯蔵のためのDNA、メッセージのためのRNA、触媒のためのタンパク質—は、すべての現代生物学を特徴づけている。
LUCA:最後の普遍共通祖先
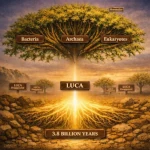
現在のすべての生命形態は、最後の普遍共通祖先であるLUCAの子孫である。2024年の研究は、彼が約42億年前に生きていたと推定しており、約2.75 Mbのゲノムが約2,600のタンパク質をコードしている。嫌気性でおそらく酢酸生成性のLUCAは、すでに確立された生態系の一部であり、ウイルスとの軍拡競争に従事していた。その非常に早い出現は、生命のいくつかの段階がもっともらしい物理化学的メカニズムに基づいていることを示唆しているが、この出現の宇宙的な頻度は不明のままである。
生命は化学的であるならば、無生物との境界はどこにあるのか?
捉えどころのない境界
物理化学的現象として、生命は分子複雑性の明確に識別可能な閾値で出現するはずだと思うかもしれない。しかし、この境界は捉えどころがないままである。生命は「魔法の分子」の突然の追加によって出現するのではなく、自己組織化、触媒反応、区画化、情報処理が織り交ざった漸進的な移行によって出現する。
機能のネットワークの創発的特性
明確な閾値が存在しないことは、化学的自己組織化プロセスの連続的な性質によって説明される。熱力学と複雑性の法則に支配された宇宙では、特定の構造が一時的に自己維持することができるが、ダーウィン的進化ができるわけではない。生命はしたがって、単一の化合物の創発的特性ではなく、機能のネットワークの創発的特性である:複製、変異、選択。
この曖昧さは、生命の定義が学問分野によって異なる理由を説明する:生物学者は繁殖を主張し、化学者は自己触媒を、物理学者は平衡から遠く離れたダイナミクスを、情報科学者は情報を処理し伝達する能力を主張する。境界はしたがって線ではなく、遷移帯域であり、物質が自分自身に作用し始める複雑性の空間である。
生命の粘り強さは、それが宇宙のいたるところに存在する証拠ではないのか?
極限環境微生物から極限環境へ
地球上では、生命はかつてその存在と両立しないと考えられていた条件で現れている:高圧熱水噴出孔、酸性湖、地表下数キロメートルの深部岩、超乾燥砂漠、強く照射された環境、または放射性核種に富む環境。これらの極限環境微生物は、以前の居住可能性基準に挑戦し、潜在的に居住可能な環境のスペクトルを大幅に広げる。その中で、Pyrolobus fumariiのような好熱菌は100°C以上で生存し、Picrophilus oshimaeのような好酸菌はゼロに近いpHに耐え、Deinococcus radioduransは数千グレイの放射線量に耐える。
クマムシ:生存のチャンピオン
クマムシは、小さな顕微鏡的な動物であり、厳密な意味での極限環境微生物ではない—極限条件に耐えるが、そこで繁栄するわけではない—が、生存記録を保持している。クリプトビオシス状態に入ることで、代謝を停止し、-272°Cから+149°Cの温度、宇宙空間、電離放射線、長期の脱水に耐えることができる。クマムシは2007年に宇宙空間に曝露され(FOTON-M3ミッション)、生存したが、太陽紫外線への曝露ははるかに致死的であることが判明した。
堅牢な現象だが、普遍的ではない
この回復力は、生命が壊れやすい事故ではなく、堅牢な現象であり、エネルギー源と複雑な分子が利用可能であれば、極端な化学的および熱的勾配に適応できることを示唆している。しかし、地球の極限環境微生物の堅牢性は、生命が一度出現すると極限条件に適応できることを示しているが、生命の出現自体が宇宙で頻繁な現象であることを証明するものではない。生命の適応性とその出現の確率の区別は、宇宙生物学の最も魅力的な未解決の問題の一つであり続けている。
地球外生命へ?
火星では、パーサヴィアランスローバー(Mars 2020ミッション)が、赤い惑星が表面に液体の水を抱えていた時代の古代のバイオシグネチャーの痕跡を積極的に探している。さらに遠くでは、2024年10月にNASAによって打ち上げられたエウロパ・クリッパーミッションが、木星の氷の月であるエウロパに向かっており、その地下海は生命に必要な条件を提供する可能性がある。探査機は2030年から49回の近接フライバイを実施し、表面下に居住可能な環境が存在するかどうかを判断する。しかし、生命の普遍性は依然として仮説である:これまでに太陽系外惑星でコンセンサスをもって確認されたバイオシグネチャーは検出されていない。地球上の生命の粘り強さは強い手がかりとなるが、その宇宙的一般性の直接的な証拠にはまだなっていない。
参考文献
- NASA Astrobiology — Origins of Life(新しいウィンドウ)
- 1989年ノーベル化学賞 — RNAの触媒特性(アルトマン&チェック)(新しいウィンドウ)
- Encyclopédie de l'environnement — 天文学を愛する地質学者が見た生命の起源(新しいウィンドウ)
- Encyclopædia Universalis — 生命の起源(アンドレ・ブラック)(新しいウィンドウ)
- Cho et al. (2024) — Protocells by spontaneous reaction of cysteine with short-chain thioesters, Nature Chemistry(新しいウィンドウ)
- Moody et al. (2024) — The nature of the last universal common ancestor and its impact on the early Earth system, Nature Ecology & Evolution(新しいウィンドウ)
- Gianni et al. (2026) — A small polymerase ribozyme that can synthesize itself and its complementary strand, Science(新しいウィンドウ)
- RNA world — Wikipedia(RNAワールド仮説、リボザイム)(新しいウィンドウ)
- NASA Science — Europa Clipper、木星の氷の月の探査ミッション(新しいウィンドウ)
- Protocell — Wikipedia(脂質小胞、コアセルベート、プレバイオティクス区画化)(新しいウィンドウ)
FAQ:不活性と生命の境界について知っておくべきこと
生きた細胞と結晶を区別するものは何か?
生きた細胞は代謝、変異を伴う自己複製能力、そしてゲノムにコードされた進化的記憶を持っている。結晶は成長し、特定の条件下で複製することができるが、その秩序は周期的で静的であり、機能的情報を欠いている。細胞は平衡から遠く離れて自己を維持するためにエネルギーと物質を変換するが、結晶は受動的なシステムであり、熱力学的平衡に近い。
ウイルスは生きているのか?
ウイルスは境界的な位置を占めている。独自の代謝を持たないため、宿主細胞の機構を乗っ取ることによってのみ繁殖できる。しかし、ゲノムを持ち、自然選択によって進化し、変異を伴って複製する。ウイルスは一般に生命の境界に置かれる:それらはいくつかの本質的な属性を持っているが、すべてではない。それらは完全に生きているわけでも完全に不活性でもなく、不活性と生命の間の境界の漸進的な性質を完全に例示している。
RNAワールドとは何か?
RNAワールドとは、遺伝情報を保存し、化学反応を触媒することができる(リボザイム)RNAが、DNAとタンパク質に先行していたという仮説である。このシステムは、現代の区画化された細胞が出現する前に、自己複製と初歩的な進化が可能なプロト生命の形態を構成していただろう。2026年、QT45の発見—自分自身のコピーを合成できる45ヌクレオチドのポリメラーゼリボザイム—は、小さなポリメラーゼリボザイムの妥当性を支持する追加の実験的論拠を提供するが、それ自体で完全なプレバイオティクスシナリオを実証するものではない。
プロトセルとは何か?
プロトセルは、膜の有無にかかわらず、生体分子を濃縮し、外部環境から隔離することができる自己組織化構造である。それは生きた細胞の仮説的な前駆体であり、プレバイオティクス化学と生物学の境界にある。ジャック・ショスタク(2009年ノーベル賞)の研究は、脂肪酸小胞がRNAをカプセル化できることを示し、区画化と情報が一体化したシステムを形成している。
LUCAはいつ出現したか?
2024年の研究(Moody et al., Nature Ecology & Evolution)は、すべての地球生命の最後の普遍共通祖先であるLUCAが、約42億年前に生きていたと推定している。この再構築によれば、それは原核生物級の嫌気性生物であり、約275万塩基対のゲノムを持ち、すでに微生物生態系に統合されていた。
生命は二元的特性か?
いいえ。生命は創発的で漸進的な特性として現れ、二元的スイッチではない。不活性物質と生きた細胞の間には、システムの連続体が広がっている:自己組織化鉱物構造、コアセルベート、触媒ネットワーク、プロトセル。各レベルは新しい機能(触媒、区画化、情報)を追加するが、明確で決定的な境界を越えることはない。
なぜ不活性と生命の境界は曖昧なままなのか?
生命は漸進的な移行から生じ、突然の飛躍からではないからである。化学的自己組織化プロセスは連続的である:複雑性が増すにつれて、新しい特性(複製、選択、記憶)が出現する。単一の分子が生命の閾値を記すことはない。このグレーゾーンは、生物学者、化学者、物理学者、情報科学者が生命の異なる定義を提案する理由も説明する。
生命は宇宙の他の場所に必然的に存在するのか?
まだそれを断言することはできない。地球生命は堅牢であることが判明し、極限環境を植民地化することができ、既知の居住可能環境の範囲を広げている。エウロパ・クリッパー・ミッション(NASA、2024年打ち上げ)は、木星の月エウロパを探査し、その地下海は生命に有利な条件を抱えている可能性がある。しかし、太陽系外惑星でコンセンサスをもって確認されたバイオシグネチャーは検出されていない。生命の普遍性はしたがって、魅力的ではあるが証明されていない仮説のままである。
 第零法則から生成AIへ:問われるアシモフの法則
 複雑な社会はどのように誕生し、消滅するのか?
 AIに直面する脳:データ洪水に圧倒される器官のクロニクル
 AIは考えることを学んだ:人工意識は存在することを学ぶのか?
 未来への執着:予測が生命を形作るとき
 次期氷河期にどの地域が居住可能か?
 21世紀のダーウィンの雷鳴:加速する進化
 致命的不均衡:極小の物質の予想外の力
 進化の大フィルター:フェルミのパラドックスの鍵
 なぜヒマワリは太陽の方を向くのか?ラグランジアンによる解答
 世界人口2026:大陸別の人口動向
 なぜ生命は不均衡から生まれ、熱力学的平衡で消滅するのか
 電磁スペクトルと視覚:私たちの目が捉える地球の姿
 自己と非自己:物理法則から見たアイデンティティの簡単な解説
 分子時計:突然変異の偶然性から時間の測定へ
 最小細胞:避けられない出現
 ホワイトサンズの足跡:アメリカ大陸の最初の一歩
 ホミニン:出現、拡散、絶滅
 出生率の低下:人口災害か自然な進化か?
 自然選択 vs 偶然:なぜ進化は宝くじではないのか?
 生命が地球から始まったら?パンスペルミア理論の革命
 世界を激変させる大分岐:生存か崩壊か?
 原始化学:最初の有機分子はどこで生まれたのか?
 COとCO₂:2つのガス、2つのリスク、2つの生物学的メカニズム
 自発的同期:物理学から生命までの普遍的現象
 時間的課題:10億年をどのように視覚化するか?
 生命の誕生に不可欠な3つの要素
 なぜホモ属は90万年前に絶滅の危機に瀕したのか?
 影の生物圏
 人間中心主義の衰退:宇宙が私たちの重要性を相対化するとき
 カブトガニ:生きている化石!
 生命の起源:パンスペルミア理論
 生命の起源:ホワイトスモーカー理論
 なぜ37度セルシウスなのか?
 私たちは宇宙で孤独なのか?科学と推測の間で
 氷の中の生命の痕跡:先史時代のマムートの出現
 ドリアス期:メガファウナを絶滅させたミニ氷河期
 2つの大氷河期:凍った地球の海で生き残る
 動物の切断後の再生:器官の再生
 生命の果て:地底のメフィスト、深淵の虫
 宇宙で固体フラーレンが発見される
 人間の歩行:原人の二足歩行の起源
 カラボ:人間進化の窓
 エントロピー:時間とは何か?
 無生物から生命への移行
 複雑さの物語:素粒子から最初の生物まで
 メガポード:火山の熱を利用する
 アルディピテクス:440万年前のエチオピアの原人
 自然選択:カバマダラの例
 オルドビス紀:サンゴ、三葉虫、放散虫の時代
 液体の水:単なる溶媒以上、化学反応の促進剤
 ネアンデルタール人:人類の失われたいとこ
 ASIMO:最初のヒューマノイド
 是什么条件允许了生命的出现?
 フェルミのパラドックスとプラトンの洞窟:私たちは孤独か、それとも盲目か?
 クマムシ:生物学の法則に挑戦する不死身の生物
 トゥーマイ:最古の原人の一つ
 生命の樹:数十億の絶滅種と単一の祖先コミュニティ
 深海の生命:極限の適応を遂げた生物
 シアノバクテリアと酸素危機:原始的な環境災害
 物質から生命へ:生物学的出現の曖昧な境界
 世界最小のカエル:微小脊椎動物の生理的秘密
 小氷期の説明
 生命の光:月が明かすバイオシグネチャー
 生きている光:生物発光の驚異的な秘密
 感覚を超えて:科学の大革命
 原始のスープ:地球生命の化学的揺籃
 世界人口:10億人から人口飽和へ
 生態学と崩壊:イースター島の事例
 フラクタル:自己組織化された普遍的構造