

生物的退化:生物多様性の隠れた原動力
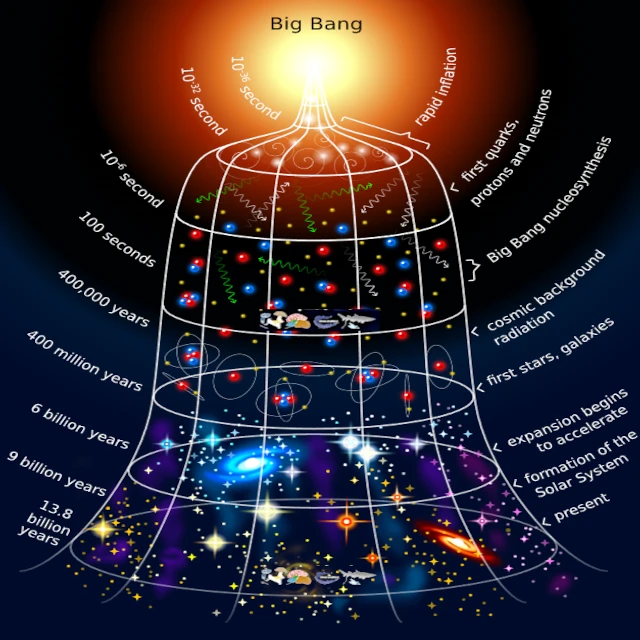
画像の説明:生命の起源から現在までのタイムライン、観測可能な宇宙の始まりから現在まで、10-32秒から138億年の対数スケール。
画像ソース:Wikipedia Commons (新しいウィンドウ)
科学的要約
この記事は、複雑性への直線的な進歩という考えに対抗して、単純化や機能喪失の進化プロセスを記述する退行の概念を検討しています。進化には事前に定義された方向性はありません。自然選択は、形態学的退行(例:洞窟魚の眼の喪失、ヘビの四肢)を伴う場合でも、適応を促進します。一部の生物に見られる複雑性の増加は普遍的な傾向ではなく、プリゴジンの散逸構造理論が記述するように、熱力学的平衡から遠く離れた開放系における自己組織化の副次的効果です。
生物学的進化は、より複雑さへの継続的な進歩なのか?
いいえ、進化は直線的な進歩ではありません。退行とは、適応が単純化や複雑な形質の喪失(洞窟魚の失明など)を伴う場合を指します。進化には方向性も目的もなく、与えられた環境で機能するものを選択します。複雑さは目標ではなく、生命システムの自己組織化の副次的効果に過ぎない場合もあります。実際には、自然は「進歩」せず、適応するものであり、単純化はエネルギーを節約するための勝ち戦略であることがよくあります。
こちらもおすすめ
宇宙の探検をさらに深めるためのテーマをご紹介します:
退化:種の進化の別の視点
チャールズ・ダーウィン(1809-1882)以来、進化論は自然選択 (自然選択、生物が環境に適応するプロセス)の原則に基づいています。 これは、環境に最も適応した形質の伝達を促進します。 一般的なイメージでは、進化は複雑性の増大への線形的な進歩として認識されています。 しかし、自然は進化に特権的な方向性がないことを示しています:進化は単純化された形態、器官の喪失、さらには真の退化に至ることもあります。
進化には方向性も目的もありません。進化は環境が提供する可能性を探求し、機能するものを保持します。たとえそれが見かけ上の単純化であってもです。スティーブン・ジェイ・グールド(1941-2002)が指摘したように、複雑性は生命の偶発的な結果であり、目的地ではありません。 退化は、自然が「進歩」するのではなく、適応することを思い出させます。
N.B.:
退化という用語は、現代生物学によって正式な概念として認められていません。これは、機能的な喪失や進化的な単純化の過程を比喩的に説明するものです。
"自然選択による種の起源"
彼の理論「自然選択による種の起源、あるいは生存競争における優れた種の保存」(1859年)において、チャールズ・ダーウィンは「進化」という言葉を一度も使用しませんでした。 この用語は、最後の版(1872年の第6版)の最終文でのみ登場します: 「生命のこの見方には壮大さがある… これほど単純な始まりから、無数の最も美しく驚異的な形態が進化し、今も進化し続けている。」
ダーウィンは「進化」という言葉を避けていました。なぜなら、彼以前は、この言葉が主に予めプログラムされた発展、内部的な計画の展開(特にラマルクの場合)を指していたからです。しかし、彼の理論は計画や方向性の欠如に基づいていたのです。
退化、または失うことで得る技術
単純化が利点となるとき
知性、サイズ、完全性への継続的な上昇は、人間中心主義に染まったビジョンであり、チャールズ・ダーウィンの理論の誤解です。 時には、最良の適応は退行することです。
退化は「退歩」という否定的な意味での言葉ではありません。 むしろ、生物が複雑な特徴を失い、より単純な形態を獲得する進化的な現象を指します。これは祖先への「戻り」ではなく、減算による新たな適応です。駆動力は「退歩」ではなく、複雑性が負担となるときに単純性を選択する選択圧です。
進歩の幻想:進化が退行するとき
すべての複雑な構造にはコストがかかります。 各器官、細胞ネットワーク、または発現した遺伝子は、エネルギーを消費し、遺伝的制御とメンテナンスを必要とします。 環境が特定の機能を要求しなくなると、それらを維持していた選択圧が消失します。 種は、生物学的構造を単純化することでエネルギー効率を高めます。
| 生物 | 失われたまたは単純化された特徴 | 適応の原因または文脈 | コメント |
|---|---|---|---|
| 洞窟魚 Astyanax mexicanus | 目の喪失と色素の喪失 | 完全な暗闇での生活、エネルギーの節約 | 視力を失うことは進化の「誤り」ではありません。これは、これらの種が極端な生態的ニッチを征服することを可能にした注目すべき適応です。 |
| 条虫 (Taenia solium) | 消化管の消失 | 宿主からの栄養素の直接吸収 | 代謝の極端な低下と消化器系の喪失は、寄生生活への完全な特化につながり、寄生虫は宿主から直接栄養素を吸収することで生存します。 |
| ヘビ (トカゲの子孫) | 前肢 後肢 | 掘削への適応 体の波動による移動 | 肢の喪失は、掘削生活や体の波動による移動と関連しており、これは穴を掘ったり獲物を追いかけたりするのにより効率的です。 |
| クジラ (Balaenoptera musculus) | 後肢の喪失 | 水生環境への完全な適応 | 後肢は抵抗の原因となり、泳ぎをはるかに非効率にします。 |
| ペンギン (Aptenodytes forsteri) | 飛行能力の喪失 | 翼のヒレへの変化 | 空力から水力への変換により、水中での効率的な推進が可能になります。 |
| ダチョウ (Struthio camelus) | 飛行不能 | 陸上での高速走行への適応 | エネルギーは走行に振り向けられます:残存する翼はバランスと求愛ディスプレイに使用されます。 |
| ハキリアリ Atta cephalotes | セルロースを 消化する能力 | 菌類との共生 分業 | セルロースの消化を共生菌に外部化したため、この生理的能力を失いました。これにより、各コロニーのメンバーが相互扶助的な食物システムに貢献する集団的な特化が促進されます。 |
| 鳥 Apteryx australis (キウイ) | 翼と目の縮小 | ニュージーランドの森林での夜行性および陸上生活 | 羽毛は毛皮のようなふわふわした質感に退化し、一方、末端の鼻孔と過剰に発達した嗅覚がこの単純化を補い、夜行性の捕食者として特化しています。 |
| 両生類 Proteus anguinus | 機能的な目の喪失 | 石灰岩洞窟での地下生活 | 萎縮した視覚器官は光に対する皮膚の感受性に置き換えられました。 |
複雑性の増大の謎:偶然と必然
自然は、意図や方向性なしに、原始的な細胞から複雑な多細胞生物へと、生きている物質の組織化をどのように進めるのでしょうか?
その答えは、開放系の熱力学と自己組織化の論理にあります。
隠れた力:盲目的なプロセス、組織化された結果
生物学的進化は進歩ではなく、可能性の探求です。 進化には目的がありません(複雑性へ向かう目標はありません)。 各生物学的変化は、単に局所的な制約の結果です:ランダムな突然変異、物理的および化学的な相互作用、そして与えられた環境における自然選択。 これらの制約の一部は、安定した構造の出現、つまりより組織化された構造を促進します。
したがって、私たちが生物圏で観察する複雑性の増大は、普遍的な傾向ではなく、散逸系の物理学の副次的な効果です。
生きているシステムとしての散逸構造
生きているシステムは、熱力学的平衡から遠く離れた開放系です。 それは環境と物質やエネルギーを絶えず交換しています。 イリヤ・プリゴジン(1917-2003)の理論によれば、これらのシステムは、エネルギーの流れが一定の臨界しきい値を超えると、自己組織化することができます。
N.B.:
原理:一定のエネルギーの流れは、エントロピーが外部に散逸する限り、秩序立った構造を維持することができます。
単純な細胞から核を持つ細胞(真核生物)へ
真核細胞への移行は「進歩」ではなく、安定した共生の結果です。 原始的な細胞(古細菌)が、好気性細菌 (酸素を呼吸とエネルギー生産に使用する単細胞微生物)を取り込み、それがミトコンドリア (呼吸とATP生産を担う細胞小器官)になりました。 この内部共生 (2つの異なる生物間の持続的な共生関係)の過程により、エネルギーをより効率的に利用できるようになり、自己組織化の能力が向上しました。 これは階層的な移行よりもエネルギー的な移行です。
盲目的なプロセスの魔法:出現と選択
類似した細胞が協力してエネルギーと栄養素の流れをよりよく管理すると、機能的な分化が自然に出現します。 一部の細胞は構造に特化し、他の細胞は繁殖やコミュニケーションに特化します。
組織の各レベル(細胞→組織→器官→生物)は、「計画」の産物ではなく、相互作用の徐々な安定化の結果です。 システムがエネルギーを交換し、情報(遺伝的、エピジェネティック、または化学的)を維持するほど、システムは構造化することができ、動的なバランスを失うことなくなります。 物理的な観点からは、秩序立った複雑な構造を維持するには、一定のエネルギーの流れが必要です。
\( \text{複雑性} \approx \text{安定性} + \text{エネルギーの流れ} + \text{保存された情報} \)
FAQ:生物学的退行に関するあらゆる情報
退行とは正確には何であり、それは本当の科学的概念なのか?
退行は、生物学で正式に認められているわけではない比喩的な用語であり、単純化や機能喪失につながる進化を説明するために使用されます。これは「後戻り」を意味するのではなく、複雑な形質(例:器官)の喪失が、その器官がもはや有用でないか、維持するのにエネルギーがかかりすぎる場合に選択的利点となる、引き算による適応です。
なぜ単純化が進化上の利点となる場合があるのか?
複雑な構造(器官、遺伝子)には、エネルギーと維持コストがかかります。環境が変化し、ある機能が不要になると、自然選択はそれを維持しなくなります。建築を単純化する(例:高価な器官を失う)個体は、エネルギーを節約でき、よりよく繁殖できます。したがって、単純化は、安定した環境や極端な環境(洞窟、寄生)において、成功する適応戦略です。
計画や方向性がないにもかかわらず、どのように複雑性は増加しうるのか?
複雑性はプログラムされた進歩ではなく、自己組織化の創発的効果です。プリゴジンの理論によれば、生物はエネルギーと物質を交換する開放系です。一定のエネルギー流は秩序だった構造を維持できます(局所エントロピーの減少)。内部共生(例:ミトコンドリア)などのプロセスはエネルギー効率を高め、より大きな複雑性を可能にします。これは物理的帰結であり、進化的意図ではありません。
 暁新世-始新世移行期:地球の気候が突然変わった時
 最小作用の原理:なぜ自然は常に最も経済的な道を選ぶのか?
 収斂進化:偶然、必然…それとも幻?
 五大大量絶滅:これらの地球規模の災厄は何を語るのか?
 氷圏:氷の巨人がまだ私たちを守っている
 窒素循環:空気から生命へ
 ジェット気流:大気の川が氾濫するとき
 炭素サイクル:海洋、森林、地下の調和的な相互作用
 水のパラドックス:水なしに生命なし
 なぜ220V交流がコンセントに?物理学の問題
 最後の氷河期ショック:ヤンガードライアスと先史時代の社会への影響
 世界のエネルギー消費の進化:蒸気機関からデジタルサーバーまで
 人口転換:成長か衰退か?
 アガシーズ湖:気候を変えた大洪水
 酔っ払いの森:永久凍土の融解現象を理解する
 空気中の電気!
 なぜCO2は地面に落ちないのか?
 エルニーニョとラニーニャ:太平洋の二つの息吹が地球の気候を律する
 絶滅危惧種:絶滅のダイナミクス
 酸性雨の有毒な遺産
 気候変動の数字:科学データが語るもの
 持続可能な開発とは何か?
 観測史上最も暑い年
 今後の気候変動の規模
 危機に瀕する地球:崩壊か再生か?
 危機に瀕する氷:北極海氷の避けられない減少
 地球の水資源:海洋から地下水まで
 海面上昇の速度はどれくらいか?
 もう一つの気候の脅威:地球が影と湿気に包まれる
 サハラの年齢:緑の草原から石の砂漠へ
 1800年から2100年までの世界人口
 石油:再生可能エネルギー時代における巨人の没落
 カムチャツカのタラバガニ:海の巨人
 イースター島:社会の崩壊
 世界のエコロジカル・フットプリントのわずかな進展
 南大西洋異常
 地盤沈下現象
 なぜ地球はこんなに頻繁に曇っているのか?
 地球の新しい雲
 デザーテック:ヨーロッパとアフリカのための太陽エネルギーの夢