


収束進化:偶然か、必然か……それとも蜃気楼か?
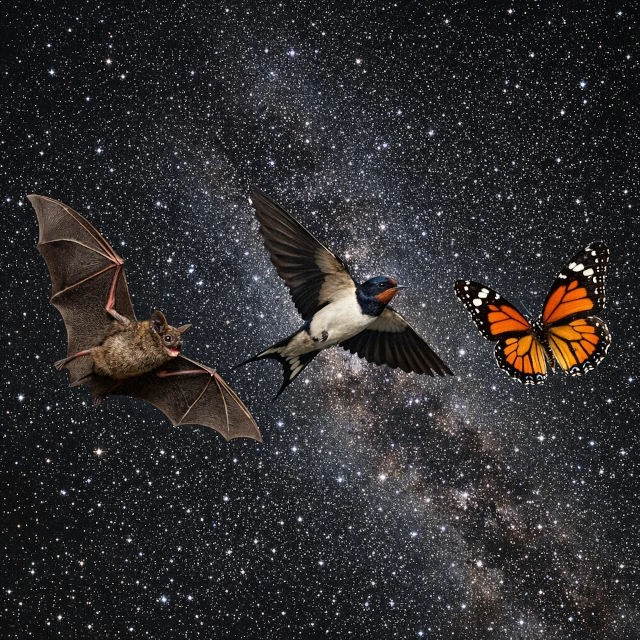
独立した系統に由来する三つの翼構造:コウモリ(哺乳類)、鳥(鳥類型恐竜)、蝶(昆虫)。
それぞれが、共通の飛翔祖先から受け継ぐことなく、能動的飛翔を発達させた。
この不可解な収束進化は、偶然の産物ではないのだろうか?
画像出典:astronoo.com(新しいウィンドウ) - AI生成画像、パブリックドメイン。
科学的要約
Astronooの記事は収束進化を検討する。これは、独立した系統が比較可能な環境制約に応じて類似した形質を発達させる現象である。頭足類と脊椎動物の眼、鳥、コウモリ、昆虫の飛翔、あるいは甲殻類化などの例を通して、著者は、ある形態的・機能的解決策が繰り返し現れることを示す。しかし、Pax6のような共有された祖先遺伝子の発見や、先祖返りの現象は、これらの収束が常に純粋な独立発明ではなく、時には古い遺伝プログラムの再活性化であることを示唆する。記事はこうして、生命の進化における偶発性と必然性の役割を問いかける。
進化的つながりのない種が、なぜ似てくるのか?
進化は同じ制約に対して同じ解決策で応答するからである。生物が類似した環境に生息したり、比較可能な課題に直面したりすると、自然選択はそれらを類似の形態、機能、行動へと押しやる。たとえ最近の共通祖先がなくても。これが収束進化の原理であり、イルカと魚竜が流体力学的なシルエットを共有する理由、タコの眼が脊椎動物の眼に似る理由、砂漠の植物が同じ生存戦略を発達させる理由を説明する。自然は無数の道を探るが、物理法則と生物学的法則がしばしば解決策を同じアーキテクチャに引き戻す。
こちらもおすすめ
宇宙の探検をさらに深めるためのテーマをご紹介します:
収束進化とは何か?
簡単な定義
収束進化は、進化の中で最も魅力的な現象の一つである。 何億年もの隔たりをもつ、非常に遠い系統に由来する種が、驚くほど類似した形質を発達させうることを示す。 別々の進化の結果として提示されるこれらの類似性は、引用されるメカニズムが本当にそれほど近い解決策を説明するのに十分なのかという問いを提起する。
何百万年もかけて同じ驚異を再発明し——あるいは繰り返す
捕食者から逃れるために速く泳ぐ、深海で光を知覚する、空を征服する、温度変化に耐える、 酸素の乏しい環境でガス交換を最適化する、極端な圧力に耐える、不足時にエネルギーを節約する、化学信号を検出する、 あるいは捕食を逃れるために身を隠す——これらはすべて環境によって課される制約である。
理論によれば、進化のメカニズムは、計画も目的も設計も持たずに、世代を経て最も効果的な解決策を探り、選択する。 しかし、非常に遠い系統が何度も同じ答えに到達するように見えるとき、疑問が生じる:自然は本当に再発明しているのか、それとも私たちが思うよりも標識された道をたどっているのか? すべては、進化がほとんど自らに逆らいながら、その発明のいくつかを繰り返すよう促されているかのように起こる。
不可避的な傾向……あるいはそれに似たもの
この現象は、完全に偶発的で無作為な進化という考えを揺るがすように見える。 もはや単なる偶然ではなく、一種の反復する傾向の問題であろう:自然選択は、不屈のエンジニアのように、種を限られた一連の効果的な解決策へと押しやる。 まるで物質とエネルギーの法則が、背景で生命の可能な形態のいくつかを課しているかのようである。 飛ぶための翼、見るための眼、獲物を無力化するための毒……これらはすべて、直接のつながりのない系統に現れた革新であり、自然が私たちが垣間見るだけの取扱説明書に従っているかのように思わせる。
スティーヴン・ジェイ・グールドの問い:偶然か、不可避か?
古生物学者スティーヴン・ジェイ・グールド(1941–2002)は、進化を大部分が予測不可能で偶発的なプロセスと見なしていたが、それでも収束が厄介な問いを提起することを認めていた: もし生命のある形態が偶然の産物だけでなく、より深い制約、そしておそらく不可避なものの表現でもあるとしたら? 彼のエッセイワンダフル・ライフで、彼は「生命のテープを再生する」ことを想像し、問いかけた:進化の歴史が再び始まったなら、同じ生き物が、あるいは少なくとも存在の課題に対する同じ解決策が再び現れるだろうか? 収束は反復を示唆するように見える……しかし、進化において何が本当に偶然に属するのかについても疑問を残す。
本当に予測可能な多様性なのか?
この考えは目まいがするような視点を開く:生命の多様性は、その見かけの豊かさにもかかわらず、私たちが想像するよりも予測可能な枠組みに収まるのかもしれない。 物理世界の制約は、フィルターとして作用し、特定の革新だけを出現させるだろう——それらは、奇妙なことに、非常に遠い起源をもつ種に現れるのである。 おそらく謙遜の教訓であり、また、自然の創意を方向づける、まだ十分に理解されていないより深い規則が存在するのではないかと問う招待でもある。
生物界における収束進化の表——あるいはそれに似たもの
以下の表は、しばしば引用される収束進化の事例をいくつか挙げ、関係するグループ、その適応機能、分岐の推定年代、代表的な例を明示する。
| 収束するとされる形質 | いわゆる独立したグループ | 適応機能 | 分岐年代 | 例と特徴 |
|---|---|---|---|---|
| 単レンズ眼 | 脊椎動物 / 頭足類 | 像の形成 | >5.5億年前 | ヒト(盲点あり)/ コウイカ(盲点なし):共有された遺伝的遺産にもかかわらず、驚くべき類似性 |
| 能動的飛翔(翼) | 昆虫 / 翼竜 / 鳥 / コウモリ | 空中移動 | >3.5億年前 | 四つの異なる体制、しかし類似した解決策を課すように思われる空気力学的制約 |
| 甲殻類化(カニの形) | 真のカニ / 偽のカニ(異尾類) | 保護、横歩き | >2億年前 | 「カニ化」:遠い系統が同じシルエットを採用、おそらく類似した制約の下で |
| 反響定位 | コウモリ / イルカ / アナツバメ | 暗闇での航行と狩り | >8000万年前 | 類似した音響メカニズム、しかし時に驚くほど収束した遺伝的基盤 |
| カモフラージュ(同色) | 昆虫 / 鳥 / 哺乳類 | 身を隠す | >3億年前 | ナナフシ、ランカマキリ、ホッキョクウサギ:類似した戦略、しかし生化学的経路は必ずしも独立ではない |
| 麻痺性毒 | ヘビ / アシナシトカゲ / クモ / サソリ / カエル | 獲物の固定または防御 | >2億年前 | 類似した毒素、時に共通祖先にすでに存在した遺伝子ファミリーに基づく |
| 生物発光 | 昆虫 / 深海魚 / 細菌 / 菌類 / イカ | 誘引、囮、カモフラージュ | >5億年前 | ルシフェリンとルシフェラーゼ:同じ化学反応、しかし真に独立した起源は議論の余地がある |
| 極限環境耐性(放射線耐性) | 古細菌 / 細菌 / クマムシ | 極度の耐性 | >27億年前 | 類似したDNA修復機構、おそらく非常に古い分子モジュールに由来 |
視覚の厄介な歴史
予想外の共通祖先
収束進化の例として挙げられるすべての中で、眼は間違いなく最も壮観であり、おそらく最も当惑させるものでもある。 なぜなら、生物学者がその起源を探れば探るほど、単純な収束という明白な考えは複雑になるように見えるからである。
タコとヒトの共通祖先は、約5億5000万年前から6億年前(先カンブリア時代後期)に生息した原始的な左右相称動物の蠕虫であった。 この動物は水晶体、網膜、瞳孔を備えた構造化された眼を持っていなかったが、あらゆる視覚的装備を欠いていたわけでもなかった: それはすでに初歩的な光受容体、Pax6遺伝子(ハエからヒト、タコに至るまで保存された眼の発生のマスター遺伝子)、 眼の発生の真の指揮者、そして動物系統全体で共有される祖先オプシン(すべての動物に共通する原始的な光感受性タンパク質、現在のすべての視色素の分子的前駆体)を運んでいた。
Pax6の役割
まさにここで、収束という概念はそれほど明白でなくなる。 ヴァルター・ヤコブ・ゲーリング(1939–2014)が1983年に、マウスのPax6遺伝子をショウジョウバエに注入すると触角に眼の形成を引き起こすことを示したとき、 彼は、眼の基礎となる遺伝プログラムが、何億年も隔たった動物に共通であることを明らかにした。 したがって、タコとヒトはおそらく眼をゼロから「再発明」したのではなく、それぞれの方法で同じ祖先的分子キットを再活性化し、驚くほど近いアーキテクチャに至ったのであろう。
先祖返り:収束への挑戦
先祖返りとは何か?
先祖返りとは、現代の生物において、何百万年も前に消えた古い形質が再出現することを指す。 この現象は、特定の形質が進化によって本当に「再発明」されるのではなく、ゲノムにまだ存在するが沈黙している祖先的遺伝プログラムから単に再活性化されうることを示す。 歯を発達させるニワトリ、脚を持って再出現するクジラ、あるいは肢の芽を現すヘビは、生命が古い構造を再創造するのではなく再活性化するこの能力を例示している。
収束への帰結
したがって先祖返りは収束進化の解釈を複雑にする:時に独立した発明として提示されるものは、既存の遺伝モジュールの再活性化にすぎないかもしれない。 言い換えれば、ある「収束」は、環境の制約によって課された新しい解決策ではなく、生命の深い歴史に刻まれた古い状態への可能な回帰なのかもしれない。
ダーウィンが築いた基盤は依然として強固である
ダーウィンの三本柱
チャールズ・ダーウィン(1809–1882)が1859年に提唱した枠組みは、三つの主要な原理に基づく:共通祖先からの変化を伴う継承、個体間の遺伝的変異、そして選別メカニズムとしての自然選択である。 これら三本柱は今日、遺伝学、古生物学、分子系統学、直接観察によって確認されている。 科学コミュニティの真面目な成員は誰もそれらを疑わない。
確認され、豊かになった枠組み
ダーウィンは本質を捉えていたが、彼が提案したメカニズムはもはやすべてを説明するのに十分ではない。 21世紀eの生物学は彼の業績に矛盾しない:それを拡張し、完成させ、豊かにする——時に私たちが想像した以上に。現代遺伝学の貢献と最近の古生物学的データは、ダーウィンの枠組みの力を確認しつつ、それを微妙に調整している。
覚えておくべきこと:収束 vs 偶発性
可能な予測可能性
収束進化は、環境と物理法則が、完全に偶然に任されることなく、似た解決策へと進化を導きうる程度を示すだろう。 それはこうして、類似した制約が働くなら、地球外知能の形態が他の場所で出現する可能性——確実性ではなく——を開く。 眼、翼、あるいは類似した社会構造が現れるかもしれない……あるいは、生命が時に私たちが想像したよりも標識された道をたどることを示唆するかもしれない。
還元不能な偶発性
しかしこの理論的可能性は、より深い現実を覆い隠してはならない:進化的軌跡は、予期することのできない唯一無二の連鎖によって大きく形作られ続けている。
そしてなお、これらの厄介な類似性にもかかわらず、地球生命は 驚くほど偶発的な歴史の産物であり続ける(進化において、偶発性とは出来事の連鎖の唯一無二で再現不可能な性格を指す:一度だけ起こり、同一に再生できない歴史。)、 ありそうもなく再現不可能な出来事の連続によって形作られている。 この道のりが、その断絶、事故、回り道とともに他の場所で再現されうることを示唆するものは何もない;むしろすべては、それが地球とその唯一無二の歴史に固有のものであることを示唆している。
参考文献
- Wikipédia — Convergence évolutive(新しいウィンドウ)
- Wikipedia - Convergent evolution(新しいウィンドウ)
- Van Belleghem et al. — High level of novelty under the hood of convergent evolution, Science (2022)(新しいウィンドウ)
- Wu, Wang & Xu — Convergent adaptive evolution: how common, or how rare?, National Science Review (2020)(新しいウィンドウ)
- Stayton — What does convergent evolution mean?, Philosophical Transactions of the Royal Society B(新しいウィンドウ)
- Grossnicklaus et al. — Quantification provides a conceptual basis for convergent evolution, Biological Reviews(新しいウィンドウ)
- Losos — Toward a Predictive Framework for Convergent Evolution, Integrative and Comparative Biology (2017)(新しいウィンドウ)
- Feiner et al. — Plasticity and evolutionary convergence in Greater Antillean Anolis lizards, eLife (2020)(新しいウィンドウ)
- Anderson — The evolution of flight in bats: a novel hypothesis, Mammal Review (2020)(新しいウィンドウ)
- 収束進化:進化のメカニズムと限界 — 獣医学論文(DUMAS、フランス語)(新しいウィンドウ)
FAQ – 収束進化
収束進化とは何か?
収束進化とは、最近の共通祖先を持たない種において、類似した形質が独立に出現することを指す。これらの類似性は、進化を類似した解決策へと導く比較可能な環境圧力の結果である。
収束は「プログラムされた」進化を意味するのか?
いいえ。収束はあらかじめ定められた計画ではない:それは、生存可能な解決策の数を制限する物理的、生物的、生態学的制約から生じる。進化は依然として偶発的なプロセスだが、無限ではない。
なぜ異なる種が同じ形態を発達させるのか?
特定の形態が類似した問題を解決するのに特に効果的だからである:速く泳ぐ、飛ぶ、暗闇で見る、圧力に耐える、など。環境は最も効率的な解決策を選択するフィルターとして作用する。
収束は進化が予測可能な道をたどることを証明するのか?
それは予測可能性の一部を示唆する:同じ制約に直面すると、生物は比較可能なアーキテクチャへと進化する傾向がある。しかし生命の多様性は、多くの軌跡が依然として可能であることも示している。
収束進化の最もよく知られた例は?
鳥、コウモリ、昆虫の翼;頭足類と脊椎動物の眼;魚、イルカ、魚竜の流体力学的形態;あるいはアリとシロアリの社会戦略。
収束進化は知能にも関係するのか?
はい。いくつかの系統が高度な認知形態を発達させた:頭足類、カラス科、霊長類、海生哺乳類。これは、生態学的条件がそれを促すとき、知能が独立に出現しうることを示唆する。
収束は宇宙の他の場所の生命を理解するのに役立つか?
それはヒューリスティックな枠組みを提供する:特定の解決策が普遍的に効果的なら、類似した制約を受ける他の世界で再出現するかもしれない。これは宇宙生物学の仮説を導く。
収束進化は進化論に矛盾するか?
逆である。それは進化論の自然な帰結である:自然選択は、物理学、化学、生物学の法則によって制限された可能性の空間を探る。収束はこれらの制約の力を例示している。
 暁新世-始新世移行期:地球の気候が突然変わった時
 最小作用の原理:なぜ自然は常に最も経済的な道を選ぶのか?
 収斂進化:偶然、必然…それとも幻?
 五大大量絶滅:これらの地球規模の災厄は何を語るのか?
 氷圏:氷の巨人がまだ私たちを守っている
 窒素循環:空気から生命へ
 ジェット気流:大気の川が氾濫するとき
 炭素サイクル:海洋、森林、地下の調和的な相互作用
 水のパラドックス:水なしに生命なし
 なぜ交流が主流となったのか?
 世界のエネルギー消費の進化:蒸気機関からデジタルサーバーまで
 人口転換:成長か衰退か?
 アガシーズ湖:気候を変えた大洪水
 酔っ払いの森:永久凍土の融解現象を理解する
 空気中の電気!
 なぜCO2は地面に落ちないのか?
 エルニーニョとラニーニャ:太平洋の二つの気候現象
 絶滅危惧種:絶滅のダイナミクス
 酸性雨の有毒な遺産
 文明の主な崩壊:主要な時期と原因
 気候変動の数字:科学データが語るもの
 持続可能な開発とは何か?
 観測史上最も暑い年
 今後の気候変動の規模
 危機に瀕する地球:崩壊か再生か?
 余命わずかな氷:北極海氷の不可逆的な減少
 地球の水資源:海洋から地下水まで
 海面上昇の速度はどれくらいか?
 もう一つの気候の脅威:地球が影と湿気に包まれる
 サハラの年齢:緑の草原から石の砂漠へ
 1800年から2100年までの世界人口
 石油:再生可能エネルギー時代における巨人の没落
 カムチャツカのタラバガニ:海の巨人
 イースター島:社会の崩壊
 世界のエコロジカル・フットプリントのわずかな進展
 南大西洋異常
 地盤沈下現象
 地球の新しい雲